トンボの生態学
10.成虫の生物的環境 目次

トンボの生態学 10.成虫の生物的環境
捕食者とそれに対する対抗適応
 トンボの成虫は,いろいろな生物と関わりを持って生活しています.その関わりを総称して生物的環境と呼びます.分かりやすいものとしては,トンボを食べる鳥のような捕食者,トンボが食べる餌生物との関係がありますが,少し見えにくいものとしては,共生者,寄生者,病原体,資源をめぐる競争者などとの関わりもあります.ここでは,まずトンボ成虫の生存に対して負の側面を持つ生物的環境,すなわち,捕食者,寄生者,病原体などとの相互作用を取り上げます.

 捕食者との相互作用のうち,羽化時,産卵時の捕食者との関係性については,すでに別の節でも取り上げています.ここでは捕食者の種類と捕食に対する対抗適応について整理しておくことにします.


Ⅰ.トンボの捕食者

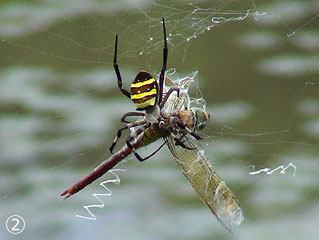
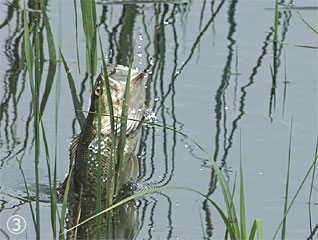
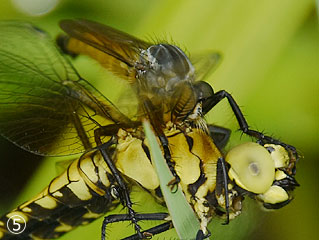
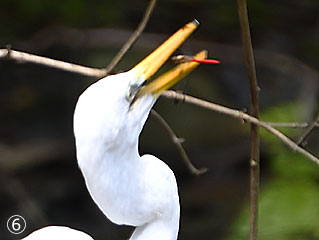
 Corbet (1999) がさまざまな文献を参照してまとめたところによると,次のような生物が捕食者としてリストされています.被子植物亜門,クモ形綱,昆虫綱の双翅目・膜翅目・トンボ目,硬骨魚綱,両生綱,鳥綱,哺乳綱とかなり幅広い分類群に広がっています.みなさんもこの中のいくつかに捕食されているシーンは観察したことがあるかもしれません.

図1.さまざまな捕食者① 被子植物亜門:モウセンゴケ.花に止まるハッチョウトンボ.
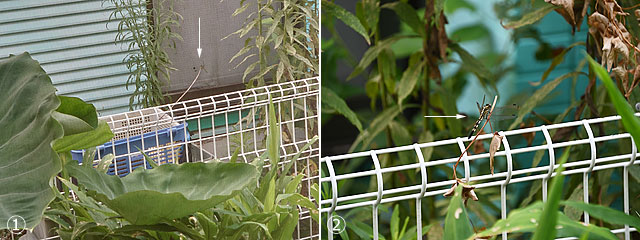
さまざまな捕食者② クモ形綱:コガネグモ.ギンヤンマを捕らえて捕食している.
図2.さまざまな捕食者③ 硬骨魚綱:オオクチバス.わかりにくいがクロイトトンボのタンデムを捕食している (最初の矢印).マウスカーソルを置くとアニメーションが始まります.
さまざまな捕食者④ 両生綱:ウシガエル?.産卵中のマユタテアカネにジャンプしてくらいついた動画.サムネイルは再読み込みすると表示されます.
図3.さまざまな捕食者⑤ 昆虫綱:ムシヒキアブ.ハラビロトンボの若いメスを捕食している.
さまざまな捕食者⑥ 鳥綱:ダイサギ.写っている木の枝に止まっていたリスアカネをあっという間に捕まえた.
 写真でいくつかの具体例を紹介しましたが,少し補足しておきましょう.被子植物亜門では,いわゆる食虫植物がその代表格ですが,そうでない植物もトンボを死に至らしめてしまう例があるようです.宮川 (1982) は,ハグロトンボがアレチウリの巻きひげに巻きつかれた事例を報告しています.一つはオスで胸部を,もう一つはメスで腹部先端を,巻きひげにとらえられていました.これらは夜の休息の間に起きたようです.このような事例は共生とか寄生とか捕食とか呼ばれるものとは違い,偶然の事故といえそうです.

 クモ形綱,いわゆるクモ類には,造網性のものと徘徊性のものがあります.我々がよく観察するのは造網性のクモに捕らえられたトンボの姿ですが,徘徊性のクモに捕らえられる例もあります.私は,羽化中のフタスジサナエがハシリグモに捕らえられたのを見たことがあります (欄外図4).なおクモの巣に関しては,トンボはこれを見ることができるみたいで,うまくよけながら飛んでいるのが観察できます.オス同士が闘争したり,産卵しているメスが突然オスや別種の捕食者に襲われそうになったときなど,別のものに気をとられたときに巣にかかってしまうようです.

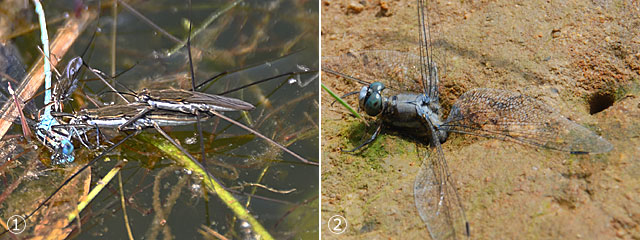
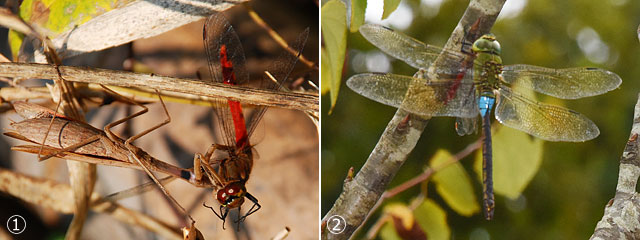
 昆虫綱には多くの肉食性のものが知られており,トンボはそれらの餌として捕らえられることが多いです.一番よく見るのはムシヒキアブがトンボを襲うところです (図3⑤).それ以外にも,カマキリ類は肉食昆虫としてよく知られていてトンボも捕まえます (図6①).アメンボのような水生の半翅目の成虫が,水面に落ちた (生きた) トンボの成虫を襲うことがあります (図5①).ちょっと驚きだったのは,ハンミョウ (鞘翅目) の幼虫が巣穴の入り口付近に止まったシオカラトンボを捕まえ,腹部を穴に引っぱり込んだところを目撃したことです (図5②).あと,膜翅目 (ハチ類) やトンボ目もトンボを捕食します (図6②).

図5.① アメンボ.水面に止まっていたムスジイトトンボのオスだろうか,アメンボに捕まっている.② ハンミョウ幼虫の穴とそこに引きずり込まれたシオカラトンボ.
図6.① カマキリ.秋の水田でアキアカネたちが集まって活動していたが,褐色の隠蔽色をしたカマキリに捕食された.② ギンヤンマ.アカトンボの産卵場はギンヤンマの狩りの場所になる.連結産卵をしていたマイコアカネのオスが犠牲になった.
 硬骨魚綱は,主に産卵しているペアや飛んでいるペアに水中から飛びついて捕食します.外来魚であるオオクチバスは,水面付近で飛翔している産卵トンボに飛びついて食べてしまいます (図2③アニメーション).今までにも,水面で産卵するギンヤンマのペアが飲み込まれたり,水面付近で産卵するオオキトンボに向かってジャンプしたり,交尾態で産卵場所を探して飛び回るトラフトンボに飛びついたりするのを目撃しています.卵を持ったメスを1頭捕食すれば,何千というトンボが捕食されたことになります.オオクチバスのトンボに対する被害は,幼虫より成虫の方が大きいようで,かなりの捕食圧になっているようです.なんせバスのルアー釣りにトンボパターンというのがあって,まさにトンボの格好をしたルアーが売られているぐらいですから.

 一方で外来魚のタイワンドジョウについては,ことトンボに対しては大きな捕食圧になっていないようです.むしろ,これが優勢している池では,オオクチバス等が増えず,かえってトンボの種数や個体数が多くなっていることを経験しています.

 両生綱と爬虫綱もトンボを捕食します.両生綱ではカエルがトンボの捕食者として中心的存在です (図2④動画).爬虫綱では小笠原諸島にはびこっているグリーンアノールが有名です.小笠原諸島にはたくさんの固有種がいますが,これらがグリーンアノールの捕食により危機的状況にあることが報告されています (苅部,2004).

 鳥綱では,多くの肉食性の鳥たちがトンボを捕食します.飛んでいるもの,止まっているものを,それぞれを得意技にする鳥たちがいるようです.サギは止まっているものが得意な鳥です (図3⑥).ツバメは,日本においては非常に親しみのある昆虫食の鳥で,飛びながら昆虫を捕まえます.そんな中でちょっと驚いたのは,ノスリのような猛禽のワシタカ類がトンボを食べるというお話です.Rudolph & Fisher (1993) はアルゼンチンでノスリの一種が,群れになって飛行しているトンボを次々に捕食するようすを報告しています.

 彼らによると,「不均翅亜目のトンボ (種名は記載なし) が,推定で3.9〜5.9X10⁹頭と推定される群れで飛んでいるのに出会った.この群れには,200〜300羽のアレチノスリ (Swainson's Hawk) が一緒に飛んでおり,群れの上層部で活発に摂食を行っていた.ノスリたちは群れの中に飛び込み,鋭い爪でトンボを捕らえ,食べていた.これらのノスリは数百平方キロメートルもの広範囲から集まってきたことが示唆される」と述べています.トンボの群れ自体もすごいですが,それに遠くからアレチノスリが集まってきて,爆食しているというのが,またすごいです.

 その他,トンボの大敵はハチクイ類の鳥です.彼らは小さめのトンボをよくねらいます.まらハヤブサ類もトンボの捕食者で,こちらは大型の不均翅類をよくねらうようです.いずれも体サイズに合った餌を選別しているということでしょう (Corbet, 1999).

 哺乳綱では,やはりコウモリが一番の捕食者です.これは確証がありませんが,ヤンマの黄昏飛翔はアブラコウモリが飛び始めると,どこへとなく姿を消していきます.これは捕食されることを避ける行動かもしれません.そのせいか,地面付近を飛んで摂食するカトリヤンマなどは,アブラコウモリが飛んでもまだ摂食飛翔を続けています.

 以上簡単に捕食者の行動について補足しました.


Ⅱ.トンボの共生者,寄生者,病原体

 トンボの共生者については,わずかな知見しかありません.トンボの体に付着して運ばれる原核生物,原生生物,植物などの,ある特定のステージの生物体が,消化管や体表について運ばれるという,片利共生的な生物の観察事例があるだけです (Corbet, 1999).移動については,以下に述べるミズダニが,成虫に寄生することで別の場所に移動することも知られています.

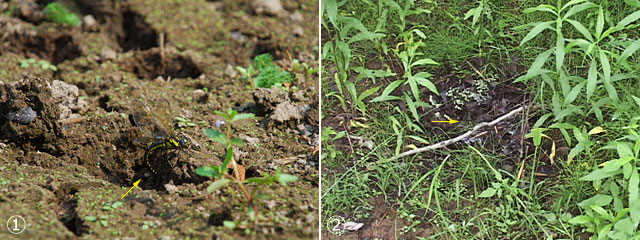
 そんな中で一つ私が気になっている相互作用の事例があります.それは,イノシシとネアカヨシヤンマやサラサヤンマとの関係です.ネアカヨシヤンマは湿地の中にできたイノシシの足跡に産卵することが多く見られ,またサラサヤンマ幼虫の生活場所となったり,成虫がなわばりを形成する湿地の中にある小さな水たまりは,湿地に堀られたイノシシの古い穴であるという観察です.

図8.① イノシシの足跡に産卵するネアカヨシヤンマ.水の引いた湿地の表面は乾燥して堅くなっている.足跡の部分は土が軟らかくなって産卵しやすくなっている.また産卵姿勢もとりやすい.② サラサヤンマのなわばりは,ずっと以前に掘られたイノシシの穴であって,水がたまっている.こういう場所は幼虫の生活場所にもなる.黄色の矢印がトンボ.
 これらの生物の関係は,直接的な相互作用がないことから,共生関係というには少しその定義から外れるように思われます.ただ生物学辞典 (第4版) によると「(相互作用は) 環境を媒介にして働きあう作用−反作用系を含む広義に用いられたこともある」との記述があるので,広義の片利作用 (片利共生) commensalism と呼ぶことができるかもしれません.

 成虫への寄生者としては,我々もよく目にするミズダニがあります.ミズダニにもいろいろな種類があるようですが,筆者は門外漢ですので,分類に関してここで述べるのはやめておきます.トンボに多く見られるのは,ヨロイミズダニ属 Genus Arrenurus のミズダニだそうです.Åbro (1990) はノルウェイ西部の孤立した小さな山岳湖や池に生息している4種の均翅類,Pyrrhosoma nymphula,Coenagrion hastulatum,Enallagma cyathigerum,アオイトトンボ の4種に寄生するヨロイミズダニ属の一種について詳細に観察しています.

 ヨロイミズダニ属の一般的な生活史は欄外に示したとおりで,トンボに寄生するのは幼虫期だけです.Åbro (1990) が調べた4種の均翅類のうち,Coenagrion hastulatum,Enallagma cyathigerum の2種は羽化時に寄生され,Pyrrhosoma nymphula とアオイトトンボは若干羽化時に寄生されたものもありましたが,多くは生殖期になって水辺を訪れたときに寄生されたということです.

 ミズダニに限らずダニ類は,寄生するとスタイロストーム stylostome という体液を吸入する管を形成します.これはダニが口に針状の管を持っているわけではなく,ダニの口から分泌される消化酵素が,クチクラから表皮へと組織を分解していき,つくられる穴です.そして穴の壁は宿主の免疫反応によって硬化し,スタイロストームが完成します.

 つまりミズダニの大量寄生は,クチクラを大きく傷つけ,宿主であるトンボを弱らせます.またたくさんのスタイロストームが形成されると,ダニが成長してトンボから離れた後にそこから体液中の水分が失われて成虫が乾燥化してしまうといった害もあるとされています (Åbro, 1990).

図9.① ルリイトトンボのメスにたくさん寄生しているミズダニ.② シコクトゲオトンボに寄生しているミズダニ.いずれも種名は不明である.
 トンボに感染する病原体に関してはほとんど知見が見つかりません.一つよく知られているのは,菌類の感染です.冬虫夏草といわれる,昆虫に感染する菌類が知られています.大浜ら (1993:154) にヤンマタケ Hymenostible odonatae Kobayashi がミルンヤンマとアキアカネに感染した写真が掲載されています.染谷 (1995) では,ひと冬の調査で,ノシメトンボ59個体,ナツアカネ27個体,マユタテアカネ1個体,ミルンヤンマ6個体を発見しています.こう書くとたくさん見つかるように思われますが,実際はなかなか見られません.


Ⅲ.捕食者に対する対抗適応

 トンボは食物連鎖の中位の段階にある消費者ですから,より上位のさまざまな動物の餌になります.でも食べられるばかりでは彼らも浮かばれません.長い共存生活の中でいろいろな防御手段を進化させています.これらをまとめて対抗適応 counter-adaptation といいます.次にこの対抗適応について話を進めていきましょう.

 トンボの捕食者に対する対抗適応の中心は,擬態です.擬態には,基本的に標識的擬態 (ベーツ型擬態) と隠蔽的擬態 (カモフラージュ型擬態) があります.標識型擬態というのは,生物学辞典には「無害なアブがハチに似た目立つ色彩を持つなどのように捕食者をあざむく」といった例が挙げられています.例えばハッチョウトンボのメスはハチのまだら模様とよく似ており,一種の擬態ではないかと考えられます.

図10.産卵のため打水しながら飛翔しているハッチョウトンボのメス.ハッチョウトンボのオスは全身が真っ赤になり写真のメスとは全く異なる色彩である.このメスの黄色の縞模様は止まっているときはハチと見間違えることは少ないが,飛んでいるときは,その小ささとすばしこさもあって,ハチが飛んでいるように見える.
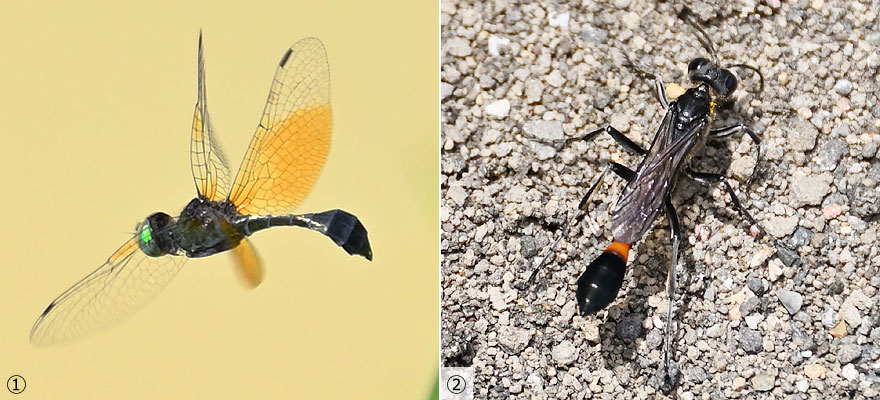
 また台湾に分布するハッチョウトンボの近縁のアサケトンボ Nannophyopsis clara のオスは,腹部先端が膨らみ,それを下部に曲げるという動作をよく行います.これを見ていると,ジガバチを連想します.そういう意味で,これも一種の標識型擬態ではないかと考えています.いずれも小さなトンボで,捕食者の餌食になりやすいのと同時に,モデルの大きさとよく似ています.
図11.① アサケトンボのオス Nannophyopsis clara (台湾).膨らんだ腹部を下に曲げ体も真っ黒である.② ジガバチ (多分サトジガバチ).翅で隠れて見えないが,腹部は細く先が膨らむ.
 カモフラージュ型擬態の例としては,ホソミオツネントンボやホソミイトトンボの越冬時の止まり方が細い木の枯れ枝のように見えるというのがあります.図12を見ると,ホソミイトトンボの越冬色が褐色である意味がよく分かりますし,腹部をカクカクと曲げて擬態している点など,もう見事としかいいようがありません.

図12.越冬中のホソミイトトンボの擬態 (神戸のトンボ広場 権兵衛さん撮影).オリジナル記事は,神戸のトンボ広場「正月のホソミイトトンボ 2025年1月4日(土) 18:57」にあります .
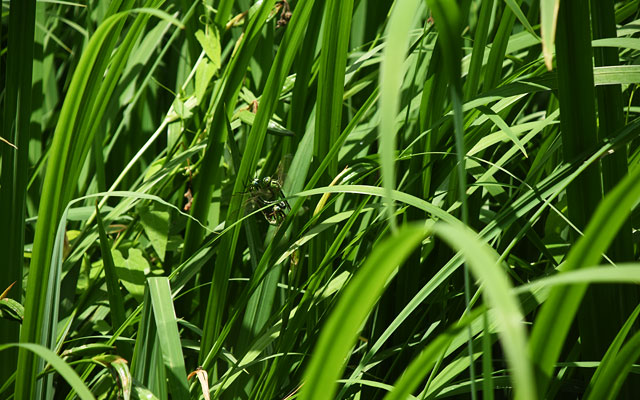
 他には,すでにオツネントンボやオオキトンボの例で紹介した,いわゆる保護色といわれるような色彩です.これら以外にも,マコモの茂みの中を飛ぶアオヤンマもそのなかまに入れることができるように思えます.

図13.マコモの密生する中で活動するアオヤンマたち.緑の体色が背景に,黒い斑紋がその影にカモフラージュしているように見える.
 擬態は捕食者の方にも見られます.図6①の褐色のカマキリなどはその例でしょう.おそらくこのアキアカネは不用意に近くに止まったに違いありません.また図2④のカエルも,地面の色に溶け込んでおり,マユタテアカネは存在に気づかず何度も近くで打泥していました.

 以上,これら擬態に関しては,あくまでヒトの目で見てそう見えるだけであり,トンボの視覚がヒトと違うことを考えると,果たして本当に擬態として効果あるかどうかは分かりません.アカトンボの赤色は我々には非常によく目立つ色ですが,アキアカネの視覚では,赤の領域をあまり感じないらしいので (Futahashi et al., 2015),トンボの世界では意外と目立っていないのかもしれません.

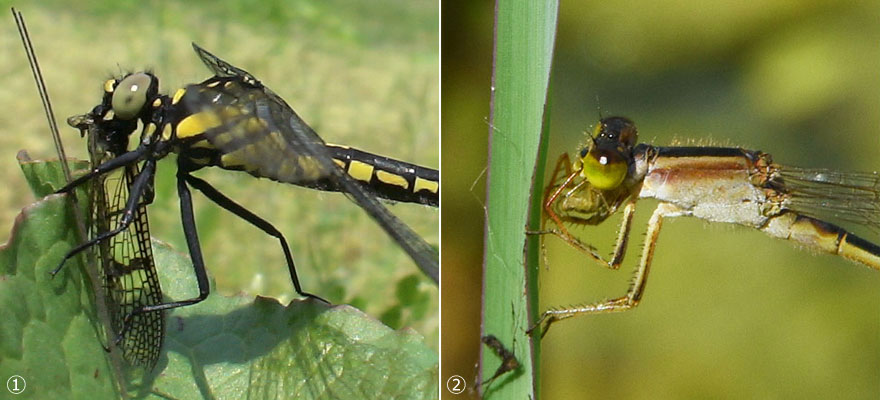
 その他の対抗適応としては,不動反射が知られており,横歩きというちょっと聞き慣れない行動が知られています.横歩きは割合普通に見られます.写真を撮ろうとして細い茎に止まっているイトトンボに近づこうとすると,トンボが茎のまわりを回って裏側に隠れようとするのです.またオニヤンマなど大型のトンボを手でつかむと噛みつかれたり,産卵管で突き刺されたりることがありますが,これも一種の対抗適応です.

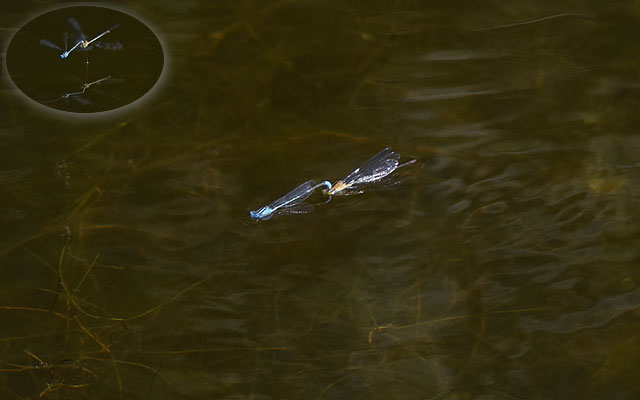
 不動反射については,それらしい行動を一度目撃したことがあります.タンデムのムスジイトトンボが開けた水面を飛んでいるとき,シオカラトンボが急激に接近しました.するとこのペアは飛ぶのを突然中止し,水面にぽたりと落ちて浮かびました.しばらくそのままの姿勢でいましたが,5秒ほどして飛び立ちました.これは厳密には不動反射とはいえないかもしれませんが,一つの対抗適応だと考えてよいでしょう.

図14.水面すれすれをタンデムで飛んでいたムスジイトトンボのペア (左上) が,シオカラトンボの急激な接近に対し,突然飛ぶのを止め水面にポタリと落ちてじっとしているところ.5秒ほどじっとしていた.

トンボの生態学 10.成虫の生物的環境
競争
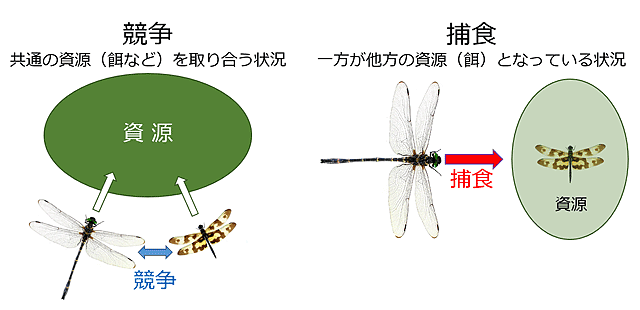
 この項では,競争についてお話ししようと思います.競争という概念をまずはっきりとさせておきましょう.トンボと他の生物 (トンボも含む) の間にはさまざまな相互作用があります.このうち競争というのは,資源を2個体以上の生物が取り合う状況をさします.資源というのは,生きていくために必要な物,あるいは存在目的のために必須の物と考えてください.競争が「捕食−被食」の関係と混同されることがありますが,少し意味が違います (図15).

図15.競争と捕食の違い.競争とは,一つの資源を2以上の個体が同じ資源を取り合う状況のことをさす.一方捕食は,被食者が資源そのものに位置づけられる.
 競争には,干渉型競争と消費型競争があります.前者は競争者のうち強い方が他方に干渉して資源を使わせないようにするような競争形態です.極端な場合は,弱い方を捕食して殺してしまうことも含みます.消費型競争とは,強い方が資源を先に消費してしまい,弱い方に資源がうまく配分されなくなるような競争形態です.

 競争を生物学的に理解するためには,もう一つ,生態的地位 (ニッチ) という考え方を知る必要があります.一つの生物が生きていくためには,まず活動のための時期,時間,空間を適切に選ぶ必要があります.次にその生物が利用できる餌などの栄養資源が必要です.また温度,日長などの物理的環境が許容範囲であることが求められます.これら時空間,栄養の種類,物理的環境の範囲等は,生物の種ごとに固有のものです.非常に抽象的ですが,これらの要素とその範囲の総体が生態的地位として定義されます.またこのように論理的に定義される生態的地位を基本ニッチと呼びます.

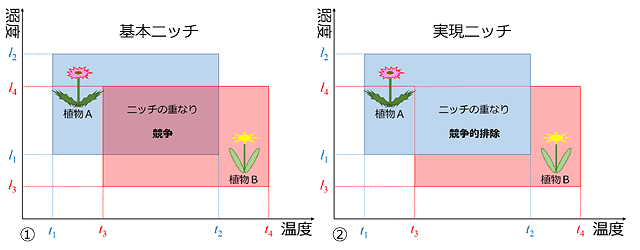
 競争は,原則的にニッチに重なりがある種間 (個体間) で,その重なりのある部分で生じ,一般的にその結果は競争的排除として一方が消失します.言葉だけではわかりにくいので,松本 (1993) が示している例を使ってまとめておきましょう.ここでは単純化のため2種の植物に登場してもらい,生態的地位を構成する要素を温度と照度だけと単純化しておきします (図16).

図16.① 競争は植物Aと植物Bの生態的地位 (ニッチ) の重なっている (図の紫色) の部分で生じる.両者がその領域に進入するとそこで植物にとって重要な資源である地面をめぐって植物Aと植物Bの間で競争が生じる.② 競争の結果一方がその領域から排除される (競争的排除).結果として,植物Aと植物Bは図のような領域 (実現ニッチ) で生活することになる.
 植物Aは照度 l1〜l2 の範囲でかつ温度t1〜t2 の範囲で生活が可能です.青い長方形が植物Aの基本ニッチになります.植物Bは照度 l3〜l4 の範囲でかつ温度t3〜t4 の範囲で生活が可能です.赤い長方形が植物Bの基本ニッチになります.その結果,照度 l1〜l4 かつ温度t3〜t2 の範囲で,両者のニッチが重なります (紫の領域).

 植物にとって根を生やす地面は欠かすことのできない資源ですから,両者が分布を広げてニッチの重なる環境条件の場所に進入したなら,そこで地面をめぐる競争が起きることになります.通常はどちらかの植物が勝ち (図16の場合は植物A),他方を排除します*1.これが競争的排除です.その結果,この場所では植物Aがニッチの重なっている領域に広がることになります.これによってできた生活領域が実現ニッチになります.競争が生じるかどうかは,たくさんのニッチの要素のうち,重なりが生じる部分の要素について考えればよいことになります.

 ちょっと理論的なお話が続きましたが,ここではトンボ成虫でこのような競争が生じているかという話になります.これは必ず生じていると考えられますが,それを実際の場面で証明するのは,理屈ほど単純ではなくて非常に難しい作業になります,それはあまりにもたくさんのニッチ要素が現実の場面には存在するからです.比較的単純化できるのは繁殖に関わる場面ですが,これについては別の節で考察することにします.

 ところで,長い間観察を続けていくと,ニッチが近いと思われるトンボ2種,これらは通常同時期,同時間帯,同所的に活動していますが,これらのうち一方が何らかの形でその時期,時間帯,場所から個体数が減っていく (または増えていく) のを感じることがあります.ここでは私が強く感じている2つの例をみなさんに紹介したいと思っています.その一つは兵庫県南部に分布を拡大してきたタイワンウチワヤンマと,以前からそこで生活していたウチワヤンマの話ですが,これは別のページで詳しく論じていますので,そちらを参照してください.もう一つ,ここで紹介するのは.兵庫県南部で最近観察されたアキアカネとタイリクアカネの分布域の変化です.

 タイリクアカネは,1960年代の兵庫県では,かなり珍しいと言われていたトンボでした.これは数が少なかったというより,海岸近くの池 (日浦・尾花,1967) やプールなど (永瀬,1967) で繁殖していたからです.通常トンボ愛好家は,秋にアカトンボを探しに,海岸近くの都会化された場所やプールなどへ出かけることはしませんから,珍しい種とされていたのでしょう.この生態が分かってからは,各地でタイリクアカネが発見されるようになりました.

 この海岸沿いに分布するという特性は,杉村ら (1999),北海道のトンボを扱った広瀬ら (2007),山陰のトンボを扱った大浜ら (1993) にも書かれています.中国・四国地方のトンボを扱った杉村ら (2008) には特にそのような記述はありませんが,土佐のトンボを扱った浜田 (1991) には海岸沿いに見られることが記載されており,中国・四国でも,やはり海岸沿いに見られていたことが確かめられます.なお,夏季には山中へ移動することが知られています.

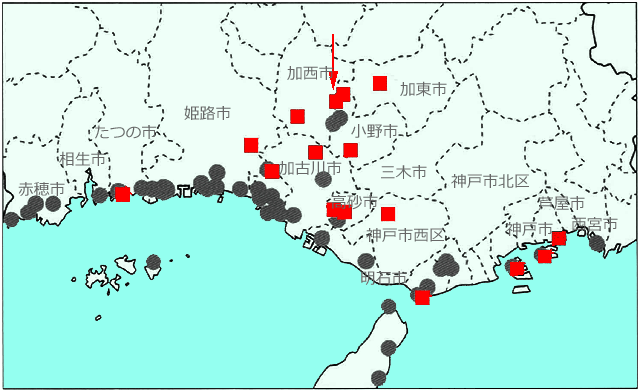
図17.タイリクアカネの発見場所を,2000年より前●,2000年以後■で示す.いずれも繁殖時期の10月以降の記録.若干調査場所に偏りがあるが,加古川市から高砂市,小野市,加東市,加西市へと内陸部へ分布が広がっていることが分かるであろう.矢印は図18の撮影地点.青木 (2019) より.
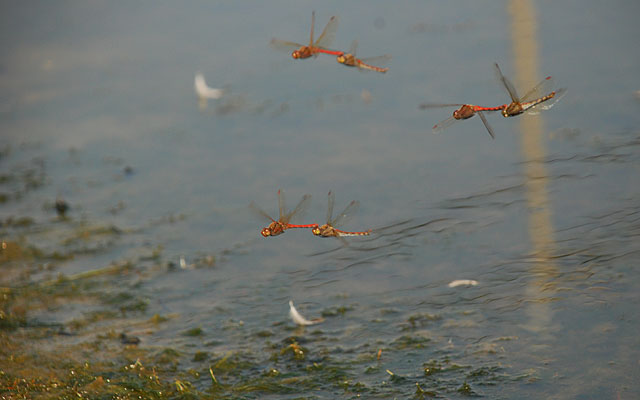
図18.図17の矢印で示された場所でのタイリクアカネの産卵活動 (加西市).2016.10.26.
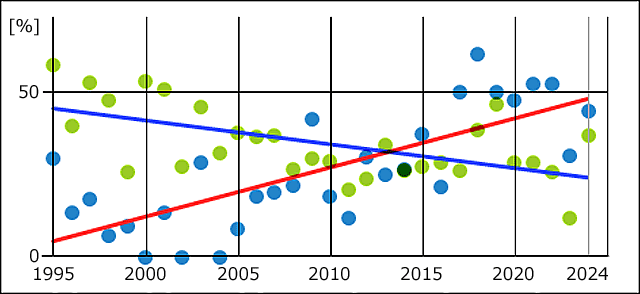
 ところが,兵庫県南部では,2000年以降に,内陸部での発見が多くなり,2025年現在では,もう普通に内陸部の平地で繁殖活動が見られるようになりました (図17,18).それに対してアキアカネは2000年あたりから著しい減少傾向が見られました (図19).図19は,発見率*2の変化なので,該当メッシュで1個体でも見つかれば存在したとして処理しています.ですからアキアカネの減少傾向がゆるやかに見えますが,あちこちで姿が消え,個体数は激減しています.なんせ,アキアカネなど街中の公園にさえ見られたぐらい,何千何万といたトンボですから,多くの場所から消えたということはその減少のすごさが推して量られることでしょう.

図19.1995年以降について,アキアカネの発見率の減少傾向とそれに反するようにタイリクアカネの発見率が増加傾向を示している.緑丸はアキアカネの各年の発見率を表し青線はその回帰直線.同様に青丸と赤線がタイリクアカネ.それぞれの相関係数は,アキアカネが0.59,タイリクアカネが0.75である.東・青木 (2025) より.
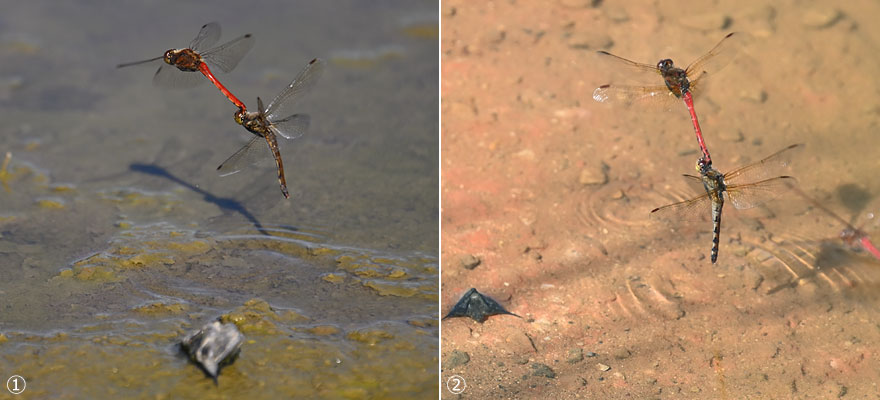
 アキアカネとタイリクアカネは,メスの産卵場所やタンデムの産卵様式 (図20),オスの静止場所などはほとんど同じで,繁殖場所・行動に関するニッチが重複しています.アキアカネの個体数が非常に多かったころは,産卵場所という資源をめぐって競争が生じ,タイリクアカネが競争的排除を受け,海岸地域や人工的プールなど,アキアカネがあまり多くない場所で繁殖を行っていたのでしょう.しかし,近年アキアカネが極端に減少してから,その競争が緩和され,タイリクアカネが内陸部でも繁殖が可能になった.という解釈になります.繁殖行動には強い動機があると考えられ,それ故,競争はかなり強い排除圧力につながると思われます.
図20.アキアカネ①とタイリクアカネ②とは,水際の浅い部分でほぼ同じように打水または打泥産卵する.産卵場所のニッチが重なっていると考えられる.個体群密度が高くなると産卵場所をめぐって競争が起きることが予想される.日付は違うが,同じ池で撮影.
 以上は全くの推論でしかありません.しかし2000年以前にも,10月以降の繁殖時期にほんの少しだけ内陸部で見つかっています (図17).また1971年9月に,六甲山の裏側の水田地帯でたくさんのアカトンボに混じってメスが1頭電線に止まっていたのを採集しています.アキアカネとタイリクアカネはよく似ていますし,アキアカネはあまりにも普通種でしたから,数は少ないながら内陸部で頑張っていたタイリクアカネの存在に,注意を払わず見逃していた可能性はあります.

 トンボにおける競争の実態は,非常に見えにくいものだと考えています.この例では,成虫の産卵場所・行動のニッチが重複していると書きましたが,ひょっとしたらその後の幼虫の生活の中にもっと激しい競争があるのかもしれません.例えばウスバキトンボの幼虫は,トンボ相の豊かな池沼ではほとんど見つかりません.でもそのような池で,水が抜かれてほとんどのトンボが姿を消したとき,ウスバキトンボが数多く発生したという経験をしています.これは他のトンボなどとの競争がなくなった結果だと考えられます.池の景観的環境は全く変わっていないのですから...

 このように,種間競争は必ず生じていると考えられるのですが,競争の実態を明らかにするのは,かなり困難なことだと思っています.ということで,この話題はこのあたりにしておき,次へ進むことにしましょう.


トンボの生態学 10.成虫の生物的環境
採餌
 他の生物との相互作用で,最後に扱うのが餌生物との関係です.トンボ成虫も「喰っていく」ためには,餌を獲る仕事をしなければなりません.野生の世界で餌を獲るためには強力なツールが必要です.トンボは大きな眼を持っており,餌は眼で見つけています.まず視力が高機能化されている必要があります.次に飛んで逃げまくる餌を捕らえるには,高度な飛行能力が要求されます.そして餌は,口器ではなく,まず脚でつかみますので,それに適した形態が脚に進化しているはずです.

 この項では,まずこのような,飛ぶ狩人であるトンボの重要な感覚器官である眼の機能についてお話をし,その後で餌生物との関わりについて見ていくことにしたいと思います.


Ⅰ.トンボ成虫の眼

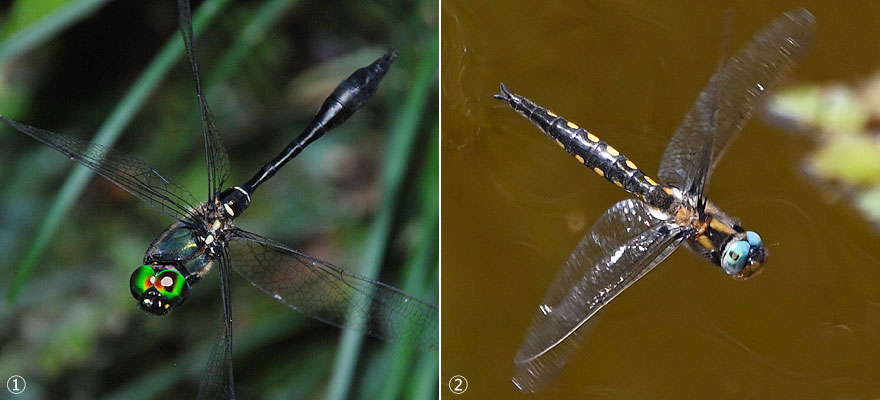
 トンボ成虫には,単眼の働きが中心となった (Stange & Howard, 1978),光背反応 dosal light response*3 というしくみが備わっています.光背反応とは,背中側を最も光の強い方向に向けて定位するという,反射による動作です.トンボはこれによって,明るい空を背中側に,暗い地面の方を腹側にして飛んでいます.トンボが旋回するときに,首から下だけを回転させ頭部は鉛直方向にまっすぐな状態になっているのは,この光背反応によってコントロールされた姿勢だと考えられます.
図21.旋回時に頭部が鉛直方向に保たれたまま首から下だけが旋回のためにローリングしている,旋回飛翔時独特の姿勢.トンボは光背反応によって頭部が鉛直方向に保たれ,旋回時に鉛直方向を正確に認識して,水平平面上を旋回していると考えられる.① ハネビロエゾトンボ,② トラフトンボ.
 トンボを部屋の中央に置いた光源の中で放すと,光源のまわりをくるくると回るように飛んだり,下から光を当てると裏向きに飛んだりするのも,光背反応によります.トンボは,鉛直下向きを,重力に対する感覚ではなく光背反応によって感知しているといえるでしょう.こうなると,理屈の上では真っ暗な夜には飛べないということになります.しかし月明かりがあると飛べるようで,ウスバキトンボが太平洋上で月夜の夜に普通に飛んでいたという記録があります (橋本・朝比奈,1969).

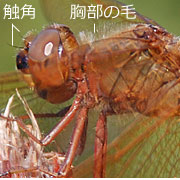
 少し話がそれましたが,この光背反応があるおかげで,飛んでいるときでもトンボの頭部が固定され,複眼の位置が水平に保たれることになります.それによって複眼は餌の位置を正確に判断できるのでしょう.また触角や頭部・胸部の細かい毛 (欄外図22) がセンサーとなって,飛行速度や飛行姿勢を判断し,巧妙な飛び方を実現しているということです (Corbet, 1999).羽ばたきのコントロールについては,飛行移動の節でお話ししました.

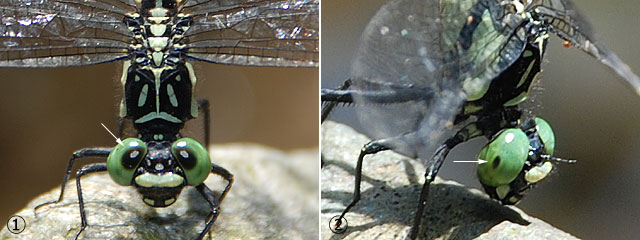
 複眼については,幼虫の時よりも数が著しく増加し,成虫の個眼にも,幼虫と同様,隣り合う角度や大きさの違いがあります.そしてその角度が小さい,すなわちその近傍の個眼がほぼ同じ方向を向いていることによる高解像度の部位があります.トンボの複眼には擬瞳孔がはっきりと見られますが,これが大きい場所ほど高解像度の部位であることが知られています (図23).

図23.パーチャーであるヒメサナエの擬瞳孔 (白矢印) の,異なる角度から見たときの大きさの違い.擬瞳孔が大きく見える部位が最も解像度が高い複眼の部位であり,その方向が非常に高い解像度でものを見ることができる.①のヒメサナエは撮影しているレンズを高解像度で見ていることになる.
 このパーチャーのヒメサナエの例では,正面のやや背面寄りの位置にかなり大きな擬瞳孔が見られます.同じものを横から見たときには擬瞳孔は小さくなっています.つまり,ヒメサナエは正面やや上部が高解像度の領域で,しかもかなり大きいので個眼の数も多いことが予想されます.

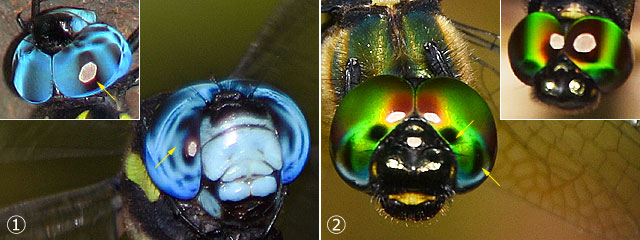
図24.フライヤーであるヤブヤンマ①とハネビロエゾトンボ②の擬瞳孔.枠内は背中側から見たもの.ヒメサナエに比べてより正面を向いた位置に擬瞳孔が見られ,背中側にも筋状の擬瞳孔が確認できる.またヤブヤンマは複眼全体に擬瞳孔が散らばっているように見える.
 フライヤーであるヤブヤンマやハネビロエゾトンボは,どちらかというと正面にくっきりとした擬瞳孔が見られ,背面には筋状の擬瞳孔が見えます.複眼の背面は短波長の青い色をよく感じる部位で (Futahashi et al., 2015),上空にも高解像度の視覚が及んでいることが分かります.

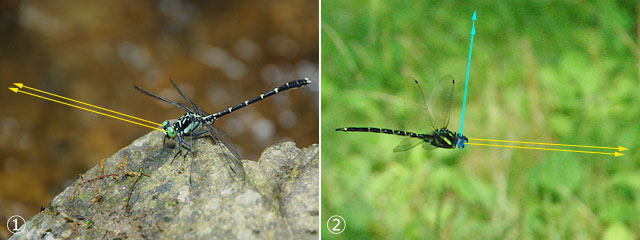
図25.擬瞳孔の写真23,24から,パーチャーであるヒメサナエ①と,フライヤーであるヤブヤンマ②が高解像度でよく見えている方向を矢印で書き込んだもの.もっともヤブヤンマは図24から見ると,四方八方がよく見えているようにも思われる.
 以下は想像になりますが,図25①を見ると,止まっているトンボは正面やや上方がよく見えており,そこを餌が飛ぶと素早く反応できるようになっているようです.一方薄暮に上空を飛んで摂食するヤブヤンマ図25②は,上空にセンサーのような視覚 (青色矢印) があって,それで青い空の中に映る影のような餌を感受した後,上空へ体を向け,正面の高解像度の視覚 (黄色矢印) で一気にねらいを定めるのでしょう.こういった研究も海外ではなされているようです (例えば,Shark, 1978 など).

 なお当然ながら,トンボの複眼は高解像度の位置以外も見えており,視界は後方を除いてほぼ360°見えています.


Ⅱ.採餌様式と食物構成

 トンボは原則的に生きた餌を捕らえます.ではどのような状態にある餌を捕らえるのでしょうか.一つは空中を飛んでいる状態の餌生物,もう一つは何かに止まっている状態の餌生物です.前者の方法をを空中採餌,後者を表面採餌と呼びます.
図26.① 空中採餌でカゲロウを捕らえたダビドサナエ.② 表面採餌でクモを捕らえたアオモンイトトンボ.
 トンボが何を食べているかについては,正確にはトンボを解剖して消化管を調べたり,免疫学的な手法で特定の断片や,その他の方法で分子を調べて,種を特定するなどの方法があります.しかしこれは非常にやっかいな方法でもあります.採餌に関しては,一般的に場当たり的なジェネラリストであるトンボは,目についた餌を次々に捕らえていると考えられています.

 そこで,間接的な方法として,Higasi et al. (1979) は,昔魚屋さんなどに天井からよくぶら下がっていた「蝿取りリボン」を 150cm X 75cm の塩ビパイプ枠に水面から30cm間隔で水平に取り付けたものを,アサヒナカワトンボの棲息する川に,7:00から19:00まで設置しました.そして捕らえられた飛翔性小昆虫の分類群を整理しました.実験は福岡県で,2日間行われました.

 その結果,双翅目 (蚊・ハエ類) がもっとも多く,2日間それぞれの個体数で86.5%,89.8%で,膜翅目 (ハチ類),半翅目 (カメムシ類),カゲロウ目,鞘翅目 (甲虫類),等がそれに続く結果を得ました.圧倒的に多かったのが双翅目の昆虫でした.彼らの研究では,それぞれの分類群の平均体重も測定しています.もしここで捕らえられた昆虫を,その通りの割合でアサヒナカワトンボが食していると仮定すると,重量百分率で75%以上の餌が双翅目から得られていることになります.

 Barid & May (1997) は Pachydiplax longipennis という体長25〜43 mm のトンボ (トンボ科) を使って,上と類似の粘着させる方法で餌生物を捕らえ (トラップ法),さらに餌を捕らえた直後のトンボをフィールドで捕まえて口にくわえた餌を取り出して (口腔法),それぞれの餌生物の種類やサイズを調べて比較しました.

 その結果,やはり圧倒的に多かった餌生物の分類群は,双翅目でした.これは,トラップ法でも口腔法でも,同じ傾向を示しました.そして,双翅目単独および各分類群を一つにして測定したサイズについては,その平均値を重量換算したもので (サイズは重量と強い正の相関関係 (筆者計算で相関係数0.94) が証明されている),双翅目の 0.085mg に対し餌生物全体では 0.095mg となっていて,両者に有意の差がなかったとされています.話が少しややこしいですが,分類群で見ても重量でみても,双翅目が圧倒的に重要な栄養源となっていることを示しているということです.

 Barid & May (1997) の研究で得られた餌生物の種類は,Higasi et al. (1979) とちょっと違っていて,鱗翅目 (チョウ・蛾類) の割合が少しだけ目立っています.鱗翅目がどれくらいトンボに食べられているかを調べた研究があります (Tesomides et al., 1982).

 彼らは,アメリカのメイン州の森林に棲息する39種について,全350個体を捕らえ,腹部を切開して調査しています.樹冠で採集できていなくて,採集方法に若干偏りがあるものの,そのうち163個体 (47%) が鱗翅目を食べていることが分かりました.分類群ごとにまとめると,イトトンボ科8%,アオイトトンボ科0%,カワトンボ科43%,サナエトンボ科35%,ヤンマ科0%,オニヤンマ科92%,ヤマトンボ科58%,エゾトンボ科30%,トンボ科58%ということでした.

 この結果は,オニヤンマ科やヤマトンボ科など大型のトンボになるとチョウの割合が高い傾向があり (もっともヤンマ科は0%だが),イトトンボ科,アオイトトンボ科など小型のトンボではその割合が小さい傾向を示しています.サナエトンボ科,エゾトンボ科,トンボ科はその中間ぐらいになっています.これから類推できることは,「トンボが大型になると鱗翅目のような大きな餌をよく食べているようだ」ということです.

 ただこれらの研究は異なる生息環境で得られたものなので,調査環境によって餌生物の傾向が変わる可能性もあることには注意しておく必要があります.

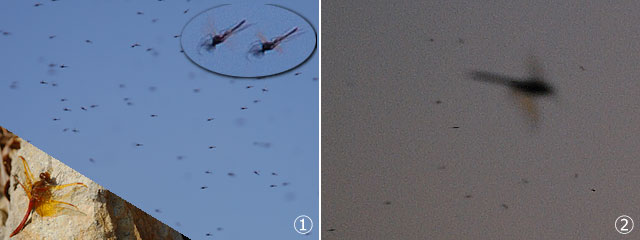
図27.① キトンボのいる池とユスリカの蚊柱.2012.1.1. 同じ場所同じ時に撮影されたキトンボとユスリカの拡大写真 ② 黄昏飛翔をするギンヤンマとユスリカの蚊柱.2009.8.22. ユスリカにピントを合わせている.
 私のフィールドに,よく年を越えてキトンボが活動する池があります.他の池で姿を消しても,天候がよければ,この池では1月の上旬ごろまでキトンボがたくさん活動しています.なぜこの池にだけ集まるのかとても不思議でしたが,この池では,ユスリカが年末から正月にかけて大量に飛ぶのが観察されますので,おそらくこの餌の豊富さがキトンボをこの池に集めているのだと思います (図27①).また黄昏飛翔においても,トンボが集まる場所には,やはり蚊柱が立っていることが観察されることがあります (図27②).

 キトンボの池のように,餌昆虫がほとんど姿を消す冬にたくさん餌が飛ぶ場所というのは,景観的環境が許容範囲であれば,トンボたちにとっては貴重な集合場所になるのだと思われます.つまり,トンボが集まる池というのは,実は景観的環境だけでは決まっていないということでしょう.特に最近のように環境悪化によって餌昆虫が減少している場合には,それがより鮮明に我々に見えるようになるのでしょう.よく整備された水田地帯にトンボが全く飛んでいないというのも,同様の理由だと思われます.

 余談になりますが,昔は蚊などはどこにでも発生していましたし,昆虫採集時にはよく蚊に刺されて悩んだものです.最近はトンボ観察に出かけても蚊に刺されることはほとんどありません.これは昔昆虫採集をした年齢の人にしか分からない経験でしょうね.ですから,景観的環境さえ見つければトンボはほとんどの場合そこに見つかり,トンボの生息環境を知ることでトンボを見つける名人となれたのでしょう.しかし最近はいるべき環境にねらいのトンボがいないことが非常に多くなりました.今の若者はそれが普通だと感じているのでしょうね.こういう状況をシフティング・ベースライン症候群 shifting Baseline Syndrome (Gaulson, 2021) というのでしょう.

 またこんな観察例もあります.私の家は市の中心街から少しはずれた住宅街にあるのですが,隣の家との間に日当たりのあまりよくない3mほどの空き地があり,ミョウガなどを植えています.この場所はどこかで発生した蚊がたくさんいて,ミョウガなどの世話をする妻はいつも蚊取り線香をぶら下げて作業していました.あるとき,そこにリスアカネのメスがやって来ました.そしてそこに居着くようになったのです.リスアカネのメスは日陰に止まっていて,何度も飛び上がっては餌を獲っていました.このリスアカネは2日間ほどで後から来たシオカラトンボのメスに追い出されましたが,次はこのメスが1週間ほど居着いたのです.これは餌資源をめぐる干渉型競争の事例ですね.

図28.① 裏の家との間に居着いたリスアカネ.2024.7.31. ② リスアカネを追い出しさらに長い間居着いたシオカラトンボのメス.2024.8.3.
 これらのトンボは,決して「自然豊かな」環境を好んでここに居着いたわけではありません.長期間居着いたのは,餌が需要を満たしていたこと以外に考えられません.実際捕食活動は頻繁に行っていました.日が当たり出すと,ちゃんと日陰に移動するといった,フィールドで見られるような行動もしていました.これらの観察は,トンボが居着くのには,餌の存在,それも双翅目の存在 (これしかいないといってよい環境である) が重要なファクターになっていることを示唆しています.


Ⅲ.効率的な採餌を行うくふう

 トンボが生息場所を決めるときに,景観的環境以外に,餌が効率的に摂取できることが重要だという考えを述べました.これが真実だとすると,次に考えられるのは,トンボが餌を効率よく摂取するために何らかの戦略を持っているのではないかということです.Corbet (1999) は,採餌効率を高める戦略を大きく6点にまとめています.


採餌効率を高める戦略の内容

 戦略1. 餌動物が時空間的に集中しているところで採餌する戦略.
 戦略2. 捕獲成功度を増加させるような行動的戦略.
 戦略3. 物理的攪乱により休止中の餌動物を飛び立たせる戦略.
 戦略4. 極端に大きな餌を採餌する戦略.
 戦略5. 採餌場所を他の捕食者が利用できないように防衛する戦略.
 戦略6. 貯食することで採餌時間を短くして採餌効率を高める戦略.

表1.Corbet (1999) による,トンボが採餌効率を高めるための戦略.
 具体例を挙げながら,簡単に見ていくことにしましょう.

 戦略1の具体例としては,黄昏飛翔が挙げられるでしょう.夏の夕方には小さな餌昆虫が群飛する時間帯があって,それをねらってトンボが集合してきます.餌生物の密度が高まれば各トンボの採餌効率は高まります.ムカシトンボが午前10:00ごろに流れの上を群飛するやや大きめの小昆虫を摂食するのも,同じでしょう.この戦略はある意味当たり前で,日常の観察でもよく見られるものです.

 戦略2の捕獲成功度を高める行動というのは,例えば太陽を背にした方が小昆虫の翅が光って見つけやすくなるといったことです.私たちも,トンボを見るとき,順光で山や水面を背景にするより,太陽を背景にして逆光でで見る方が見失わないのと同じです.ただ,これをトンボがやっているということを証明するのは困難です.

 戦略3については,他の生物ではよく見られます.農家の方が耕運機で田畑を耕し始めると,鳥たちがその後を追うようについていくといった行動です.また船に乗っていると,その航跡を追ってカモメが追随飛翔するのも同じです.これらは耕運機や船が地面や海を攪乱することによって,餌のミミズや小魚が飛び出てくるのを鳥たちがねらうというものです.トンボにも大型哺乳類が草をかき分け歩くのに追随して飛ぶのが観察されるということですが,私は見たことがありません.またトンボ自身が草の上などを飛んで餌生物を飛び立たせることもあるらしいですが,これも見たことがありません.というか,餌生物がたまたま飛び立ったと認識してしまいます.

 戦略4は,小さい餌をたくさん獲るより大きな餌を獲った方が効率がよいということです.まあ当たり前といえますが,積極的に大きな餌をねらっているということを結論づけるには相当に計画的な観察をしてみないと困難でしょう.それでもチャンスがあれば大きな餌をねらうだろうことは,トンボがときどきセミやチョウを捕らえることで認識することはできます.

 戦略5は,いわば餌資源に対してなわばりを持つという意味になります.オスがなわばりを持つことはよく見られますが,多くの場合,繁殖に関係する資源に対するなわばりであると,我々観察者は認識してしまいがちです.そういう場所でないところでの競争的排除があれば,それといえそうです.上で紹介した,家の裏でリスアカネのメスを追いやったシオカラトンボのメスの例は,この戦略5の裏返しといえるかもしれません.

 戦略6は,餌を獲った後,食べて飲み込まずに次々と餌を捕まえていくという戦略です.こういうのもあるということらしいですが,確認はなかなかできません.

 この部分をまとめてみて,観察の精度を上げていかないと,トンボの行動を正しく理解することは難しいということを感じます.


Ⅳ.餌に負けない飛翔能力

 トンボは,まず間違いなく昆虫の中では飛翔能力がずば抜けて優れている昆虫だと考えられます.自由自在に空中を飛び回る飛行方法は.まだ人類は手中に収めることはできていません.したがって,トンボは航空力学における興味の対象になっていて,飛翔能力に関してさまざまな研究が行われています.私には完全に門外漢なので,ここでは結論的なことだけを述べるにとどめます.詳しく知りたい方は,ネットを検索して調べてください.

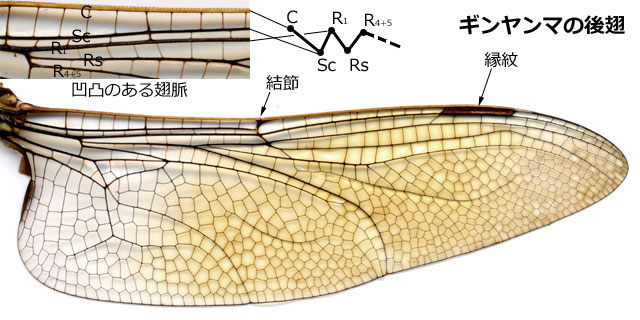
 トンボの翅は体に比べて大きく,外観を見ると飛行機の翼に近い形態をしています.しかしそこには,トンボの飛行を支えるための,普通の飛行機の翼にはない特徴的な構造があります.それは,縁紋の存在,結節の存在,そして翅脈が凹凸になっている (コルゲート翼 corrugated wing と呼ぶ) ことです (図29).

図29.ギンヤンマの後翅.トンボの翅の構造で特徴的なのは,縁紋があること,結節があること,そして翅脈に凹凸があることだ.C:前縁脈,Sc:亜前縁脈,R1:第1径脈,Rs:径分脈,R4+5:第4,5径脈.
 この翅脈の凹凸について,Fujita (2023) の研究紹介記事を参考にすると,シミュレーション結果として揚力を瞬間最大10% (平均5%) 高める働きがあったと述べられています.また縁紋に関してはフラッターという不規則な振動を防ぐ効果があることが知られています (JAXA 航空技術部門).結節に関しては,中・橋本 (2016) がその緒言で次のように述べています. 「はばたき時に翅が受動的に変形することで大きな浮上力が生成されることが報告されている....<中略>...トンボの翅は結節部分から先がねじれ変形をしやすくなっており,羽ばたき時に先端部が受動的に変形することで空気力の生成効率が向上している.」

 こういった機能的な要素とともに,軽く丈夫な構造になっていることは,私たち素人でも翅に触れることで感じることができます.トンボの翅は,飛ぶことに特化した素晴らしい構造を持っているということで,長い進化の歴史の中でそれが形成されてきたことに感動してしまいます.


Ⅴ.餌をつかむことに特化した脚

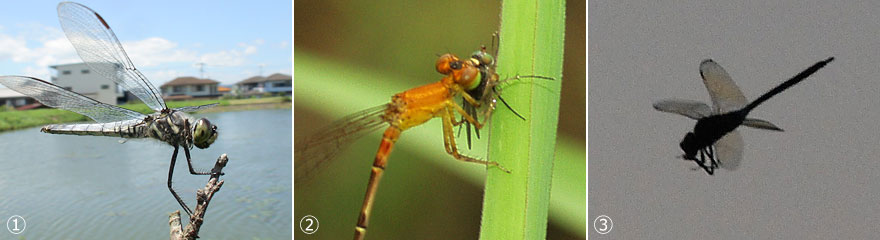
 トンボは止まるときに前脚を使わず中脚と後脚で止まることがよく見られます.前脚は頭部の横に密着させています (図30①).しかし餌を捕らえたときには,前脚でしっかりと餌を抱え込んでいます (図30②).また空中採餌でも,全部の脚を使って餌を口へ運んでいます (図30③).全部の脚が前方に曲がり伸びるようになっていることは,餌をつかみ口へ送るのに適したつくりです.
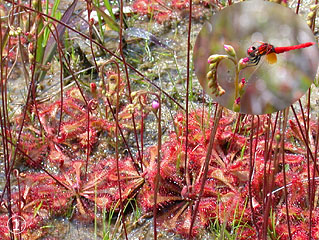
図30.① コフキトンボのメス.止まるときには,必ずしもそうではないが,前脚を使わず中脚,後脚の4本で止まる.② ヒヌマイトトンボのメス.餌を捕獲したときには,前脚でがっちりと餌をつかむ.③ ギンヤンマが黄昏飛翔時に餌を捕獲し口に運んでいる.空中採餌においてもやはり6本の脚を使って餌処理をしている.

参考文献
Åbro, A., 1990. The impact of parasites in adult populations of Zygoptera. Odonatologica 19(3): 223-233.
東 輝弥・青木典司,2025.兵庫のトンボ −分布記録と生態観察−.680pp., 自刊.
Baird, J.M. & M.L. May, 1997. Foraging behavior of Pachydiplax longipennis (Odonata: Libellulidae). Journal of Insect Behavior 10(5):655-678.
Corbet, P. S., 1999. "Dragonflies Behavior and Ecology of Odonata". Cornell Universitiy Press. New York.
Fujita, Y. & M. Iima, 2023. Dynamic lift enhancement mechanism of dragonfly wing model by vortex-corrugation interaction. Physical Review Fluids 8(12). DOI:10.1103/PhysRevFluids.8.123101. / 記事:https://www.hiroshima-u.ac.jp/news/81083
Futahashi, R., R. Kawahara-Miki, M. Kinoshita, K. Yoshitake, S. Yajima, K. Arikawa and T. Fukatsu, 2015. Extraordinary diversity of visual opsin genes in dragonflies. PNAS Early Edition. 112(11):E1247-E1256. www.pnas.org/cgi/doi/10.1073/pnas.1424670112.
Goulson, D., 2021.Silent Earth. PEW Literary Agency Limited. / 藤原多伽夫 訳.サイレント・アース 昆虫たちの「沈黙の春」.NHK出版.東京.
浜田 康,1991.土佐のトンボ.高知新聞社.高知市.
橋本 碩・朝比奈正二郎,1969.南方定点観測船に飛来した昆虫類第4報,特に蜻蛉類に関する観察.Kontyu37(3):305−319.
Higashi, K., S. Nomakuti, M. Maeda & T. yasuda, 1979, Daily food consumption of Mnais pruinosa Selys (Zygoptera: Calopterygidae). Odonatologica 8(3): 159-169.
広瀬良宏・伊藤 智・横山 透,2007.北海道のトンボ図鑑.いかだ社.東京.
日浦 勇・尾花 茂,1967.タイリクアカネの生態と分布.Gracile (5):1-6.
JAXA 航空技術部門.https://www.aero.jaxa.jp/topics/column/0258.html.2026.11.21.閲覧.
苅部治紀,2004.絶滅に瀕する固有昆虫2:固有トンボ類.東洋のガラパゴス 小笠原−固有生物の魅力とその危機−.神奈川県立生命の星・地球博物館 特別展図録・解説.147-150.
松本忠夫,1993.生態と環境.生物科学入門コース 7.183pp., 岩波書店,東京.
宮川幸三,1982.アレチウリに捕縛されたハグロトンボの雌雄.TOMBO, 25(1/4): 33-34.
中 尚義・橋本 巨,2016.トンボの翅の受動的な変形が空力特性に与える影響.日本機械学会論文集,82(833):1-14.
永瀬幸一,1967,グラキーレ・メモ(4) タイリクアカネ特集.Gracile (5):13.
大浜祥治・三島秀夫・祖田 周・淀江賢一郎,1993.自然探訪 ① 山陰のトンボ.山陰むしの会,松江.
Rudolph, D. Craig and Fisher, Charles D., 1993.Swainson's Hawk Predation on Dragonflies in Argentina.Wilson Bulletin, 105(2):365-366.
染谷 保,1995.茨城県御前山村のヤンマタケについて 日本初か担保ヤンマタケの発見.おけら(59):1-6. 茨城昆虫同好会.
杉村光俊・石田昇三・小島圭三・石田勝義・青木典司,1999.原色日本トンボ幼虫成虫大図鑑.北海道大学図書刊行会.札幌.
杉村光俊・小坂一章・吉田一夫・大浜祥治,2008.中国・四国のトンボ図鑑.いかだ社.東京.
Stange, G., and Howard, J. (1978) An ocellar dorsal light response in a dragonfly. Journal of Experimental Biology 83:351-355.
Tsomides, L., K.E. Gibbs & D.T. Jennings, 1982. Species of Odonata feeding on Lepidoptera in Spursce-fir forest of Maine. Res. Life Sci. Maine 30(1):1-12.
八杉龍一ら(編),1996.生物学辞典(第4版).2048 pp., 岩波書店,東京.