トンボの生態学
8.成虫の飛行移動 目次
トンボの生態学 8.成虫の飛行移動
トンボの翅と飛行
トンボは,誰が言ったのかは分かりませんが,その名称が「飛ぶ棒」から来ているという説があるくらい,飛ぶことに特化した昆虫です.その翅の構造や巧みな飛行術は,航空力学の研究対象として,専門的な研究がいろいろとなされています.ここではそういったことには深入りせず,その生態的学的な意味について考えることを中心にしたいと考えています.
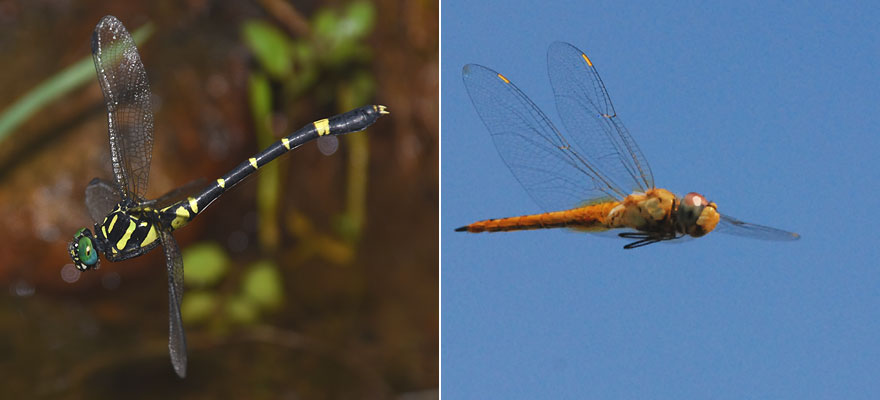
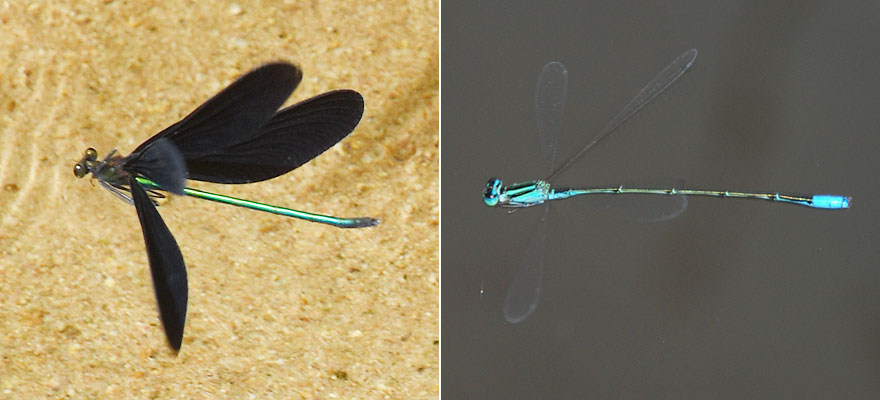
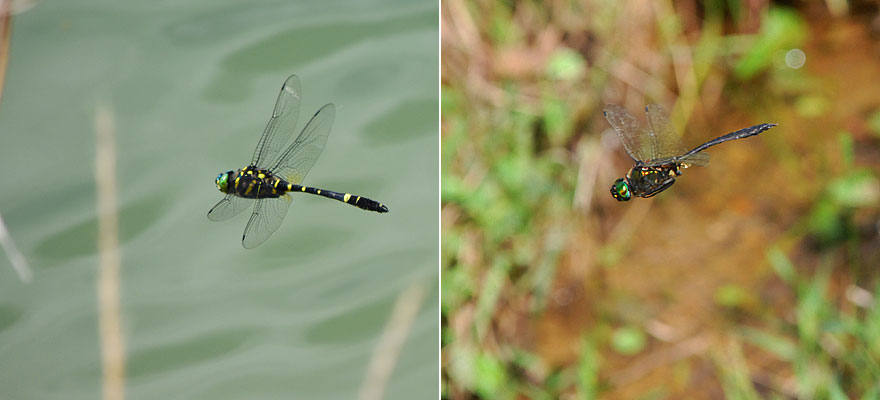
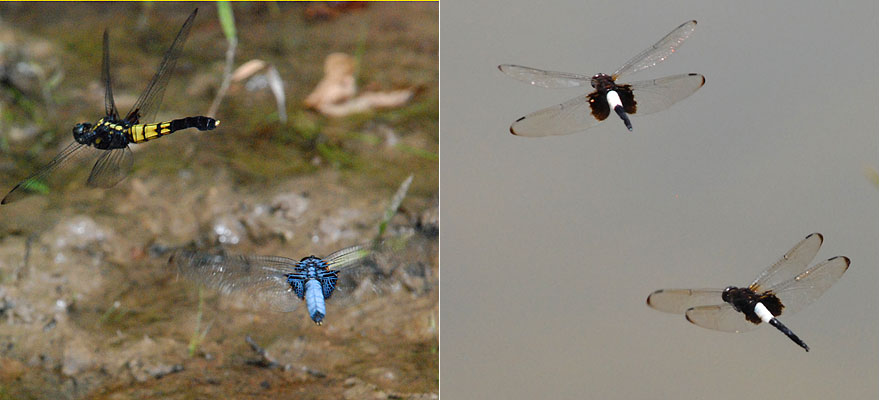
トンボには4枚の翅がありますが,はばたいて飛ぶときには,前翅と後翅の動き(位相)を少しずらせています (図2左).特に空中の一点に止まって行う停止飛翔 (ホバリング) を行う際には,ほぼ交互になるようにはばたきます (図1左).つまり前翅を打ち下ろしたときには後翅が上がり,後翅を打ち下ろしたときには前翅が上がるという具合です.ただし翅の上下動は,体軸に直角ではなく,やや前方に打ち下ろしそのままやや後方に上がるような動きをしており,同時に翅を少しねじらせるような動きをしています (図1左;図2右).一方全くはばたかずに,風に乗るように滑空飛行 (滑翔) をする場合もあります (図1右).
図1.停止飛翔するオナガサナエの翅のはばたきの動き(左)と,はばたかずに滑空飛翔するウスバキトンボ(右).
写真の上にマウスカーソルを置くとアニメーションが始まります.
図2.均翅亜目のはばたき.ハグロトンボの直線飛行で後翅が少し下の位置にありずれている(左).ホソミイトトンボの直線飛行時のはばたき(右).
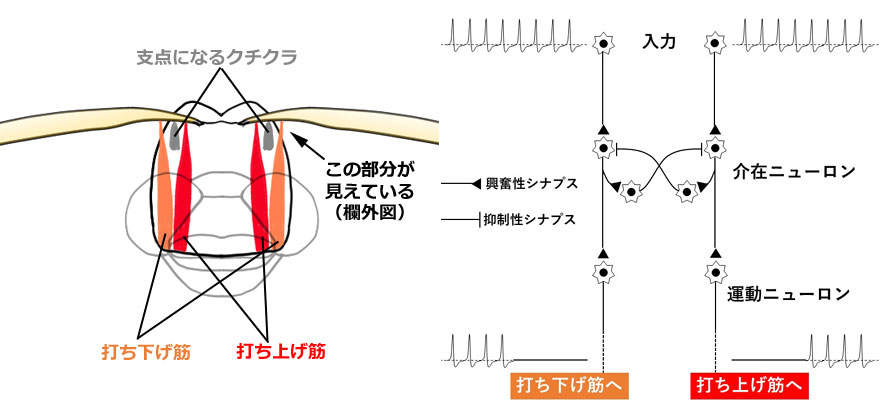
トンボの翅は横紋筋でできた筋肉によって動きます (Tillyard, 1917).トンボの翅を動かす筋肉は,神経のパルスと同期しており,1つのパルスで1回の収縮が起きます.このような筋肉を同期筋と呼びます.筋肉の一端は,支点となるクチクラの内側にある翅の基部,および外側の翅に直接結合していて (直接飛翔筋と呼ばれる),交互に収縮することで翅を動かします (図4左).トンボを捕まえて翅を背中側でたたむように持つと,そのつけ根の部分に,翅基部の外側に付いている,翅を打ち下ろすための筋肉 (腱) を観察できます (右欄外図3).Snodgrass (1935) によると,それらには basalar muscle, subalar muscle という名称がつけられており,前後翅にそれぞれ2本ずつあります.翅の筋肉付着部は,それぞれ肩板 humeral plate,腋板 axillary plate と呼ばれる堅いクチクラででできています.そしてこれら4本の筋肉の個別の動きによって翅の上下動やねじれの動き (内転・外転運動) など,複雑な動きを実現しています.
このような規則正しい連続的なはばたき運動を実現する中枢神経回路はバッタや脊椎動物でよく研究されており,中枢パターン発生器 (Central Pattern Generator;CPG) と呼ばれています.最近の高校生物の教科書にも載るぐらい一般的です.特に意識しないでも持続するリズミカルな運動をつかさどる神経回路には,この CPG が存在すると考えられています.CPG によって生み出される運動は,視覚・触覚などの感覚情報によって動きを調整できるようになっており,とっさの場合にその強さ,向きなどを変更できるようになっています.例えば歩行運動を考えてみると,あまりよい例ではありませんが,スマホを操作しながらでも歩けるのは,CPG によって自動的に歩行運動が生成されているからです.そして人影が視界に入ったとき,とっさによけることも可能です.
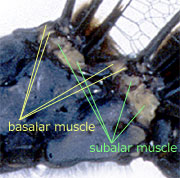
図3.非常に大きな筋肉であり,力強く羽ばたくことができる.
図4.トンボの直接飛翔筋の模式図と,はばたきをつくりだす CPG の簡略化モデル(実際は感覚情報の入力などがありもっと複雑).
図の上にマウスカーソルを置くとアニメーションが始まります.
トンボのはばたきについてはまだ CPG の存在は確かめられていないようですが,おそらくよく似たしくみがあると思われます.そして風の強さ,向き,気温,視覚情報などの感覚情報を使って,微妙に飛び方を調整しているのでしょう.なお直接飛翔筋では,はばたきの回数はそれほど多くなく,例えば野外での計測で,Epitheca cynosura で 43Hz や Anax junius で 29Hz (May, 1991),実験条件下のギンヤンマで 26~29Hz (Azuma & Watanabe, 1988)など,せいぜい1秒間に数十回というところです*1.
*1.アブのようにブーンという音を立てて非常に速くはばたく昆虫の筋肉の付き方は,トンボとは異なっています(間接飛翔筋の非同期筋).
飛行速度については,Tillyard (1917) が偶然の機会に計測した非常に極端な例があって,「Austrophlebia 属*2のトンボ(ヤンマ科)が,80~90ヤードの直線部分を3秒で飛んだ」と記しています.1ヤードは0.9144メートルですから,時速に直すと,なんと約 88-98km/h になります.彼は,これ以上のスピードを出せるトンボがいるとは思えないと述べています.計画的に記録された別の速い例では,Aeshna cyanea で 10m/s (時速 36km),A. junius で 7.5m/s (時速 27km) という計測値がありますが,これは最大速度であり普段はもっとゆっくりと飛んでいるということです (Rüppell, 1989).
*2.オーストラリアにのみ生息する大型のヤンマで,流水性.翅の前縁に褐色のラインがあることが特徴.
はばたき飛行のエネルギー源はグルコースです.筋肉にグリコーゲンとして蓄えられており,これを分解してグルコースにして利用しています.筋繊維 (筋細胞) 内にはたくさんのミトコンドリアがあって,短時間に大量のエネルギーを生み出します.ただ長時間飛行の際にはグルコースではなく脂質を代謝するような変換が起き (Kallapur & George, 1973),より長時間エネルギーを生み出すことができるようになっています.Kallapur (1985) は,ウスバキトンボについて,糖類と脂肪の蓄積量から推定して,最大8時間ぐらい「はばたき飛行」ができると述べています.
沖ノ鳥島はフィリピン海に浮かぶ岩礁ですが,ここでウスバキトンボが採集され,私のもとへ送られてきたことがあります (欄外図5).ここから最寄りの繁殖可能な陸地,例えばグアム島までは最短距離でも600kmはあります.ウスバキトンボは,多分時速88-98kmではばたき飛行できないと思われますので,その半分としても12時間以上,おそらくその数倍はかかるでしょうし,さらに遠くへ飛ばないと別の陸地には着けません.したがって,エネルギー論的に見て,このような長距離移動ははばたき飛行だけでは不可能で,風の助けを借りないと実現できないでしょう.
以上から,日常の摂食飛行,パトロール飛行,産卵のための飛行など,敏捷に動き回る場合にはグルコースを使ったはばたき飛行を中心に行い,移住のような遠距離飛行の際には脂質を使った代謝に切り替えて,風に乗った滑翔を中心とした飛行を行っていると考えられます.ネットによく出ていますが,人間でも,マラソン選手は脂質代謝を行う方がより長距離をうまく走れると言われています.トンボも同じですね.
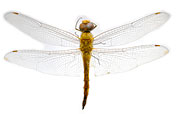
図5.沖ノ鳥島近くに停泊する船で採集されたウスバキトンボ.
トンボの生態学 8.成虫の飛行移動
トンボの飛行による移動を分類する
トンボの移動手段は飛行です.落下など緊急事態以外歩くことはほとんどありません.飛行行動には,我々人間から見て,簡単にその目的を理解できるものとできないものがあります.もちろんトンボの方は,目的など意識できず,内因性の動機や欲求,刺激に対する反応としての行動をしているだけでしょう.しかし飛行の種類を定義し分類する際に,この認識の容易さを利用する方法があります.
まず第一は,例えば餌生物を見つけたので飛んで捕獲するとか,鳥に襲われそうになったので飛んで逃げるといったときの飛行です.こういった飛行は trivial flight と呼ばれています (Corbet, 1999).ここでいう trivial という語は通常「些細な」とか「つまらない」と訳されますが,数学では「自明な」という意味で使われます.後者の意味だとすると「見ただけでその目的や意味,実態が分かる証明不要な飛行」ということでしょう.このような明白な直接的目標と結びついた欲求行動 (飛行) は,人の目の届く短時間で狭い範囲のものになるのが一般的です.おそらくそういう意味を含めて,trivial flight は「小規模飛行」と訳されています.
第二は,これ以外の,その目的や意味,実態が見ただけでは簡単には分からないような飛行です.こういった飛行は nontrivial flight と呼ばれています (Corbet, 1999).定義としては trivial flight 以外のすべての飛行ということになります.一般に長時間の広い範囲にわたる飛行は,人の目で全貌が観察できないということで,断片的な観察や知見を通して全体像を推察するしか方法がありません.おそらくそういう意味を含めて,nontrivial flight は「大規模飛行」と訳されています*3.
この大規模飛行については,さらに生息場所 habitat 内で行われている移動と,新しい生息場所への移動,つまり移住 migration を分けて考えます(Corbet, 1999).ただしこれらは概念的には区別できますが,実際は区別が難しくなる場合があります.この問題は,生息場所 habitat の範囲をどのように定義するかという点に集約されるように思います.そこで最初に,この問題に少し触れておきたいと思います.
トンボの生息場所は,生活史のステージによっていくつかの要素に分けて考えることができます.産卵が行われ卵や幼虫が生息する繁殖場所 reproductive site,成熟成虫が夜を過ごしたり,産卵意欲のないメスや未熟成虫が暮らすねぐら roost,採餌するための場所 foraging site,出会い場所 rendezvous,暑さなどを避けるための退避場所 refuge site などです.通常トンボは,一世代の間にこれらの場所間を移動しながら生活しています.したがってトンボの生息場所といえば,概念的にはこれらの集合体ということになります.
ここで,例えば池という繁殖場所について考えてみましょう.なわばりを形成するオスはそこに侵入した他のオスを追い払い,結果として一つの池に入れるオスの数に限りが出てきます.その結果その池に入れなかったオスが別の池に移動したとしましょう.そのときこの別の池は,この個体群の生息場所とみるべきか,この個体群にとっては「新しい」生息場所とみるべきかという問題が生じてきます.つまりこの移動は「移住」とみるべきなのだろうかという問題です.こういった問題は,生息場所の各要素のあらゆる場面で生じるでしょう.
Corbet (1999) はこの問題に対して次のような解答を示しています.彼は,上記の生息場所の各要素間の移動は,原則として,一世代内での「往復」または「往復の可能性が高い」移動であるという点に注目しました.対して移住は,原則として,一世代内での新しい生息場所への「片道」の移動であるということです.上記の問題は,この視点で答を出すべきだということになるでしょう.
一つの例を紹介します.山口県で行われたベッコウトンボの標識調査では,繁殖場所から半径1km以内では確認頻度が高いが,それ以遠では確認頻度が非常に低くなるという結果が出ています (三時・平田,1997).このことからベッコウトンボは比較的狭い範囲の生息場所を持つ,定住性が高いトンボだと言えるでしょう.
*3.Corbet (1962) は,トンボの生物学の以前の著作の中では,tirivial の代わりに appetential, nontirivial の代わりに non-appetential という語を使っています.appetential には「欲求の」という意味があります.今回の tirivial のほうが少し意味が広くなっているように思えます.
兵庫県では,最後のものと思われる個体群が,2001年に,加西市の近接した2カ所に生息場所を持っていました.その各要素は,調査した限りでは,やはり池とその周辺数百メートルの範囲に限られていました.しかし同じ年,そこから約10km離れた小野市と加古川市でオスが1個体ずつ見つかりました (右欄外図6).周辺を調査しましたがあたりにはベッコウトンボの個体群は見いだせませんでしたので,おそらくこれらは加西市から飛来したものと思われます.これらは元の生息場所に帰るとは考えにくいので,定義によれば,これらは移住した個体と考えるべきでしょう.このように,この定義を厳密に運用すると,定住性の高いトンボにおいても,移住が起きている場合があります.
ベッコウトンボの例に限らず,いないはずの場所にある種のトンボが突然見つかるということはときどき見られます.一番はっきりとするのは,日本に分布していないトンボが見つかるという場合でしょう.Corbet (1999) はこれらはすべて移住した個体であるとし,多くの種の個体群は移動に関しては多型的 (つまり一つの個体群の中に大なり小なり移住をする個体が混じっている) であることに留意すべきであると述べています.
では,以下で飛行の分類をし,その特性を見ていきたいと思います.
Ⅰ.小規模飛行 trivial flight
小規模飛行については,もうほとんど説明の必要はないでしょう.上に挙げた例以外では,生殖のための飛行があります.オオヤマトンボが池の周囲を飛んでパトロールする,エゾトンボのようなフライヤーがなわばりを巡回して飛ぶ,オオシオカラトンボのオスが産卵メスを警護するために飛ぶ,コシアキトンボがなわばりに侵入したオスを追飛するとか,活発な生殖活動にともなう飛行です (図7,8).
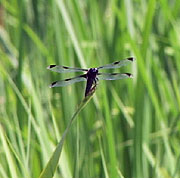
図6.生息場所から10km離れた場所で見つかったベッコウトンボ.移住が確認できるトンボは,ベッコウトンボのように生息場所が限られる希少種であることが多い.
図7.小規模飛行の例.左はオオヤマトンボの池周囲のパトロール,右はエゾトンボのなわばり飛行.こういった日の当たる場所をゆっくり飛ぶ場合,滑翔を多く用いているようだ.
図8.小規模飛行の例.左はオオシオカラトンボのオスがメスの産卵を警護するためにメスを追って飛んでいる.右はコシアキトンボの追飛.このように激しい動きを伴う飛行は,ほとんどはばたき飛行である.
Ⅱ.大規模飛行 nontrivial flight (1) 生息場所内を移動する飛行
生息場所の内部で行われる大規模飛行には,処女飛行
maiden flight,通勤飛行
commuting flight,季節的退避
seasonal refuge のための飛行の3つがあります
(Corbet, 1999).
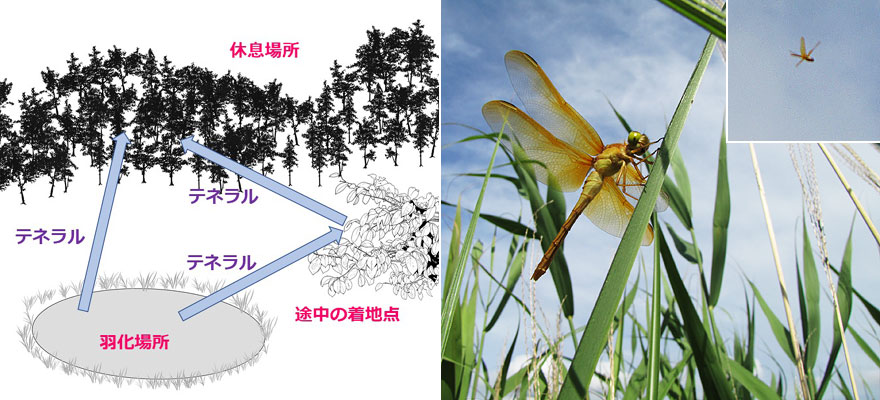
処女飛行は,羽化地点から休息場所までの飛行で,その距離は種によって大きく異なります.その距離が数十mを超えると,終着までを見届けることができませんので,終着点は推測になります (図9左).
オオキトンボで,上空に舞い上がり,その姿が見えなくなるまで高いところへ飛んで行ったのを観察した経験があります(図9右).これなどはかなりの距離移動しているものと思われます.羽化殻から飛び立った後,このように途中で近くの葉などにいったん着地することがあります.こんな時でも,テネラルな状態で再び遠くに向かって飛び立った場合,休息場所,つまり成熟するまでを過ごす場所,に着くまでの飛行全体をさします.処女飛行は,一世代の間に1回だけ行われ,片道の,テネラルな状態での飛行であるという特徴を有します.
どのトンボでもほぼ例外なく,処女飛行は水面から遠ざかるような方向に飛びます.これが刺激に対する反応行動だとすると,水面は光を反射し水平な偏光をつくり出しますので,この偏光に対する負の走性のようなものがあるのかもしれません
(Corbet, 1999).
図9.左:処女飛行を示す模式図.右:オオキトンボの途中着地と処女飛行.遠距離を飛べるように体が硬化するのを待っているように見える.
オオキトンボは池で羽化した後に草むらに飛来し一時的に休止し,気温が高くなった頃に飛び立ち,目に見えなくなるまで上昇した.
通勤飛行とは,ねぐら,繁殖場所,採餌場所,出会い場所の間の移動飛行のことです.これらの場所は,種によっては同一である場合があります.オスが水辺でなわばりを形成しメスを待つ多くのトンボでは,繁殖場所と出会い場所は同じになります.タイリクアキアカネではねぐらと出会い場所が同じです.ヒヌマイトトンボではこれら4つはすべて同じ場所のように見えます.その他いろいろな例があると思います.
通勤飛行は,前生殖期にある未熟成虫の場合や後生殖期にある老熟虫の場合は,主にねぐらと採餌場所の間の移動だけですが,生殖期にある成熟虫の場合,種ごとの生活様式によって,様々の飛行経路が存在すると思われます.各要素が離れている場合,その飛行全体を直接把握することはできません.
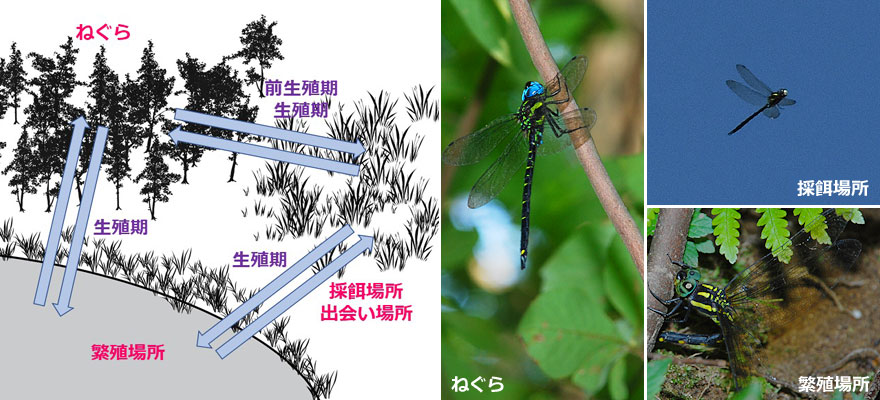
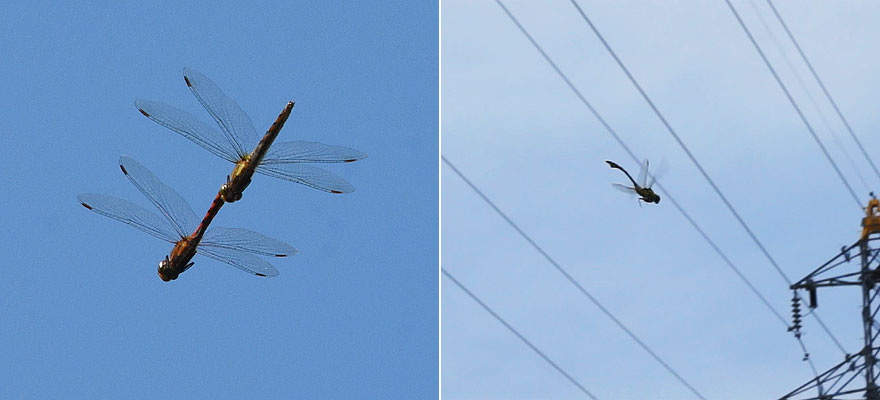
ヤブヤンマの場合,実際に確認できるのは,ねぐらである暗い林内に休息している個体,摂食する個体が明け方や夕方に谷筋の摂食場所に現れしばらくすると山の方に飛び去ること,繁殖場所ではメスが林の方から飛んできて着地し産卵を始め終わったらまた林の方に帰って行くこと,オスは林の中から現れて産卵場所で静止しメスを待つ,などです(図10右).これらの断片的観察をつなげて,飛行経路を推測することになります.開けた場所などでは,通勤飛行そのものの一部を観察することができる場合があります (図11).
なお,処女飛行は,最初の通勤飛行ととらえることが可能です.
図10.左:通勤飛行の模式図.右:ヤブヤンマのねぐら,採餌場所,繁殖場所での観察.
図11.左:アキアカネの繁殖場所へ向かう通勤飛行(往路).ねぐらと出会い場所が同じなので,タンデムではばたいたり滑翔したりして飛行する.
右:ウチワヤンマのメスの通勤飛行(復路).産卵を終えて一気に飛び上がりねぐらへ帰って行く.
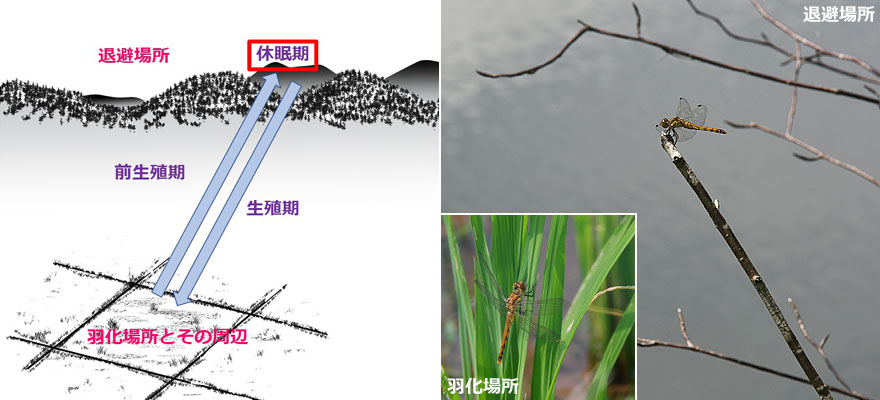
季節的退避とは,繁殖場所 (羽化場所) から暑さ・寒さや乾燥を乗り切るための退避場所への移動,およびその逆の移動です.すべての種に見られるわけではありません.一般に,退避場所へ向かうときは前生殖期の未熟成虫で,退避場所から戻るときは生殖期の成熟成虫になります.季節的退避を行う種の特徴は,そのトンボにとって不適当な季節を「休眠」して過ごすという生活史を持っていることです.退避場所では,その大部分の時期を生殖休眠の状態で過ごしています.
日本のトンボには,乾燥を乗り切るための季節的退避を行う種はありません.これは主に雨季・乾季の存在する熱帯地方に生息するトンボに見られます.暑さを乗り切るための移動は,アカネ属,アオイトトンボ属,カトリヤンマなどに見られます.卵越冬をし,幼虫期間が短く,一年一化性のトンボばかりです.寒さを乗りきるために移動するトンボとしては,成虫越冬性の種が挙げられます.
アオイトトンボ属,カトリヤンマ,一部のアカネ属では,羽化場所から比較的近い林の中に退避します.この場合,処女飛行がそのまま季節的退避の飛行になっている可能性も考えられます.アキアカネやタイリクアカネなどは,よく知られているようにかなり離れた山間部に移動しますので,相応の長距離を飛行することになります.いずれも,その全貌が自明ではない nontrivial な飛行であるといえます (図12).
図12.左:季節的退避の飛行の模式図.往路と復路の間に休眠期がはいるのが特徴.右:水田で羽化したアキアカネと高原の池で過ごすアキアカネ.
Ⅲ.大規模飛行 nontrivial flight (2) 移住-生息場所間の飛行
移住は,先に考察したように,どのトンボ種においても,個体群の一部に起きる可能性がありますが,移住が生活史の中に組み込まれていると考えられるトンボもいます.日本で見られるトンボではウスバキトンボがその代表例でしょう.もう例外なく毎年南方からやってきて日本で数世代を過ごしやがて死に絶える,というサイクルを繰り返しています.この「毎年決まったようにやって来る」というところに,移住することが生活史の一部として組み込まれていることが強く示唆されます.なおウスバキトンボの移住については,
別の章でお話しすることにします.
そこで,移住は,そのトンボ種に生活史戦略として組み込まれている「
絶対的移住 obligate migration」と,何らかの条件が整ったときに起きる「
条件的移住 facultative migration」とに分けられています.前者は個体群すべての個体に環境条件に関わりなく必ず起きるのに対し,後者は,その条件が整った個体や時期にだけ起きることになります.
絶対的移住というリスクをともなう行動が進化した理由は,その方が生存の確率が高くなる (繁殖成功度が高くなる) ような環境に生息していたからと考えるべきでしょう.ではどのような場合に絶対的移住をした方が繁殖成功度が高くなるのでしょうか.一番に考えられることは,そのトンボにとって,生息場所がある時期に生存や繁殖に不適当になるような場合でしょう.しかしこれだけでは必ずしも移住が繁殖成功度を高めることになるとは限らないのです.
例えばアキアカネは,涼しい山へ季節的退避を行うトンボです.これは平地の夏の高温 (生息環境として不適当) を避けるためというのが定説です.つまりわざわざ移住しなくても季節的退避によって不適当な環境となる時期 (不適合期) を避けることができます.そしてまた環境が適合するようになったときに帰ってくればよいというわけです.ただし,不適合期はある程度継続するので,その間の生殖休眠が欠かせません.季節的退避の特徴に,退避中の休眠期の存在があるのはそのためです.
ただしここで注目すべきは,アキアカネが季節的退避によって不適合期を乗り切れるのは,厳格にコントロールされた「一年一化」の生活史を有しているからだということです.季節は通常一年周期で変化します.したがって,一年一化であれば一年周期の季節変化と同調させた生活史が構築できるというわけです.もう一つ,夏を越せるだけの高い山があるということも重要です.例えば,関西トンボ談話会で兵庫県淡路島のトンボ分布調査をしたときに,淡路島にアキアカネが極端に少ないことが指摘されました.これについて井上 (1988) は,淡路島にはアキアカネが夏に移動できる適当な高山がないためと考察しています.
つまり季節的退避によって生息環境が不適合になる時期を乗り越えことができるのは,厳密にコントロールされた一年一化の生活史を有することと,往復移動できる範囲内に退避場所が存在することの,2つの条件が満たされたときであるということです.
以上から考えると,絶対的移住の方が有利となるトンボは,次のような条件の種だということになるでしょう.まず第一に,雨季と乾季,暑さと寒さなど,環境が適合する時期と不適合になる時期が存在し,往復移動できる近さに退避場所が
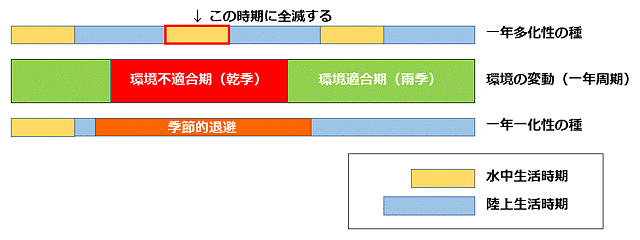
ない所に生息する種です.第二に,環境変動に生活史を同調させることが難しい化性を有すること,具体的には多化性ということになります (図13).多年一化性は一年中幼虫がいることになるので,こういう生息場所では生存できません.なお環境が適合している時期に幼虫期を過ごす必要があるので幼虫期が短いということも重要ですが,これは季節的退避でも同じです.
図13.一年周期の環境変化(雨季と乾季の例)と生活史の長さの関係.厳格にコントロールされた一年一化の種であれば,環境悪化の時期に季節的退避と休眠を行うことで,その場所で生活し続けることができる.しかし多化性の種はどこかで環境悪化の時期に幼虫期が重なってしまうので,別の生息場所に移住するしかない.
ウスバキトンボやヒメギンヤンマ
Anax ephippiger などの絶対的移住者は,このような条件を満たしています.
ところで,移住をするトンボたちはしばしば集合して大きな群れとなることが報告されています.例えばヨツボシトンボ原名亜種
Libellula quadrimaculata quadrimaculata の移住では,1個体が飛び立つと近くにいた他の個体に同じ行動が伝わり,複数の小さな群れが次第に合流して大きくなっていったと考えられています (
Dumont & Hinnekint, 1973).
また,集団で移住飛行をしているトンボの群れには,別の種類のトンボや昆虫が混じっていることがあります.枝重夫博士が Corbet 博士とともに,カナダのエリー湖北岸の半島で南へ移住中 (と彼らが推測している) のアメリカギンヤンマ
Anax junius の群れが休止している場面に遭遇しました.休止場所に同所的にいたトンボは20種類で,その中には
Tramea lacerata (ハネビロトンボ属) をはじめとした移住性のトンボが混じっていて,さらにサシバエやオオカバマダラなどの移住性の昆虫も群れで見つかっています(
Corbet & Eda, 1969).
最後に移住を行うことが知られているトンボを紹介しておきましょう.日本に飛来するものとしては,オオギンヤンマ*,アメリカギンヤンマ,ヒメギンヤンマ,ウスバキトンボ*,スナアカネ,ハネビロトンボ*,コモンヒメハネビロトンボ*などがあり,日本に定着しているトンボとしては,ギンヤンマ*,トビイロヤンマ*,アメイロトンボ*,ウミアカトンボ*,ベニヒメトンボ,ヒメトンボ*,ムツアカネ,エゾアカネ,さらに均翅亜目ではアオモンイトトンボ*やアジアイトトンボ*(世界的に見てもアオモンイトトンボ属のトンボに集中している)の名前も挙がっています(以上,
Corbet, 1999:Table 10.4, 10.5).
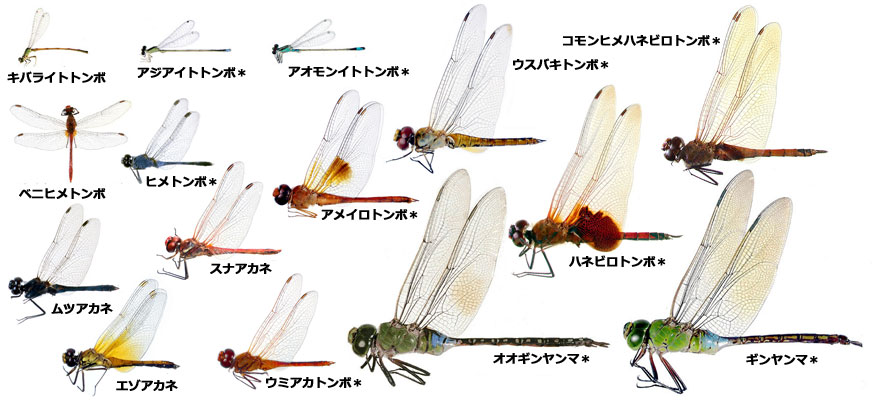
図14.日本で見られる移住を行うと報告のあるトンボたち(Corbet, 1999より).意外な種が混じっている.*印は南北大東島に分布.
沖縄から約400km離れた南北大東島は,その成立から一度も陸続きになったことがない海洋島です.島の基岩となる火山島は5,000万年以上前に形成されたそうですが,その後沈降し上部に珊瑚礁が形成され,100万年前ぐらいに今度は隆起を始めて現在の姿になった隆起珊瑚礁の島です (山口,2008).したがって原則としてそのファウナは移住によって形成されたはずです.そのせいでしょうか,南北大東島のトンボ相には上記の移住性トンボが多く含まれています(*印 津田,2000).そして,これ以外の南北大東島のトンボたちにも,ひょっとしたら移住する能力があるといえるかもしれません.例えば,近年分布拡大が見られる (た) リュウキュウベニイトトンボ,ムスジイトトンボ,アオビタイトンボ,コフキオオメトンボ (以上尾園ら,2012) などです.
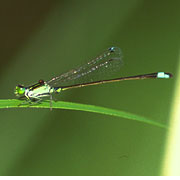
図15.南大東島を訪れたとき,こんなところにまでアオモンイトトンボはいるのかと驚いたが,移住するトンボならさもありなんという感じである.
1994年7月 南大東島在所.
トンボの生態学 8.成虫の飛行移動
トンボの飛行を助ける気流
ここでは,トンボの飛行を助ける,気流 (風といってもよい) について考えてみたいと思います.はばたき飛行はエネルギーを多く使う飛行で,長時間続けられないことはお話ししました.大規模飛行に限らず,小規模飛行においても,ヤンマ科,オニヤンマ科,ヤマトンボ科などはかなり長い時間飛び続けています.エネルギー消費という観点で,飛行全般において,滑翔による飛行エネルギーの節約には重要な意味があります.実際トンボが飛ぶのを観察していると,はばたかずにグライダーのように滑翔する姿がよく見られます.ちなみにグライダーは,上昇気流によって高度をかせぎ,その位置エネルギーを運動エネルギーに変えながら飛ぶそうです.もちろんそのままではついには地上に降りてしまいますから,再び上昇気流をとらえて位置エネルギーをかせぎ,これを繰り返すのが長い距離を飛ぶ秘訣だそうです.
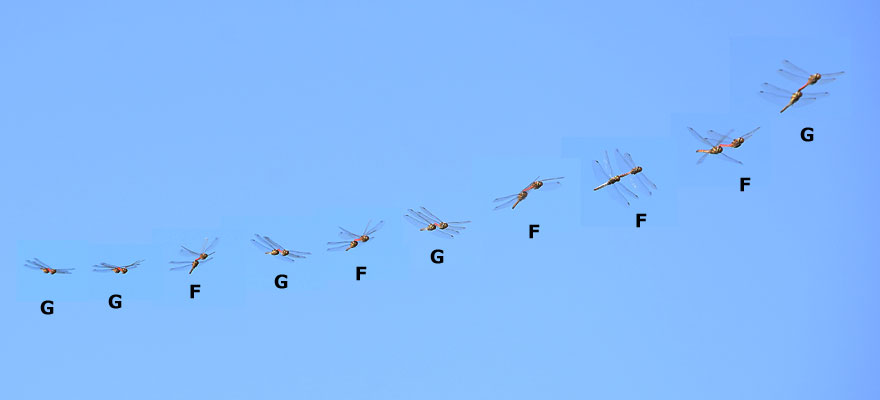
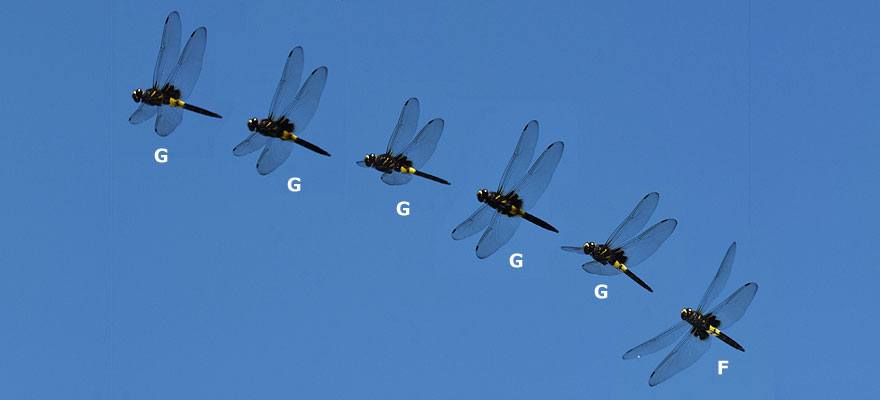
おそらくトンボの場合も,同じような原理を使っているのだと思います.ただトンボは,はばたき飛行という動力飛行もできるので,気流の状態が好ましくなくても飛び続けることが可能だといえます.実際は状況に応じて,はばたき飛行を適当に使いながら,滑翔を中心として飛んでいるのでしょう.秋の午前,アキアカネの通勤飛行をみていると,タンデムペアが高いところを滑翔しているかと思うと,風が吹いたり方向転換するときなどにはばたき飛行を行って航路を調整しながら,産卵場所に向かって飛んでいくのが観察できます(図16).またコシアキトンボの摂食飛翔のような狭い空間を飛ぶ場合でも,滑翔を多く利用して飛んでいます(図17).
図16.アキアカネの通勤飛行を連続撮影したものを使って合成.G:滑翔,F:はばたき飛行.2018年10月18日 9:46.
図17.コシアキトンボの摂食飛翔を連続撮影したものを使って合成.G:滑翔,F:はばたき飛行.2018年6月1日 15:34. 滑翔中にローリング(左右の揺れ)が起きているのが分かる.これは気流の小さな乱れによる.
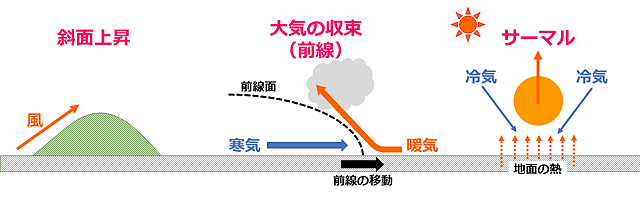
さて,滑翔を助ける上昇気流はどのようなところで発生するのでしょうか.よく知られている3つの例をおさえておきましょう.一つは風が山などの斜面を上っていくときに生じる斜面上昇,二つ目は大気の収束(前線)による上昇,三つ目はサーマルの上昇です.
図18.上昇気流を生じさせる3つの主な要因.
このうちトンボの長距離移動にとって重要な役割を果たすのは,大気の収束とサーマルとされていて,斜面上昇というのは昆虫を高い山に吹き上げる効果はあっても,長距離移動の出発のための上昇気流となることはない (
Corbet, 1999) という記述があります.
しかし私は,2025年7月30日に,ウスバキトンボが,まわりに幼虫の生活場所がないような,標高約1,000mの山頂付近にたくさん集まって摂食していたのを目撃しています.これは,これから高高度を飛んで長距離移動
*4を始める前の集団だと思われ,空気の斜面上昇が長距離移動の出発を助ける働きをしている現象ではないかと考えています.
一方サーマルは,小規模移動から大規模移動に至るまで,トンボの滑翔に重要な役割を果たしているように思えます.サーマルは,日射によって地面のある部分がその周囲より強く熱せられ,その付近の空気が温められて生じる空気塊です
*5.周囲より温度の高い空気塊 (サーマル) ができると膨張し密度が小さくなって,大気圧により浮力が働き上昇を始めます.太陽高度が高くなり日差しが強くなるほど,力強い上昇気流を生み出します.トンボが晴れた日によく飛ぶのは,体温が上がる以外に,サーマルの発達と関係があるのかもしれません.
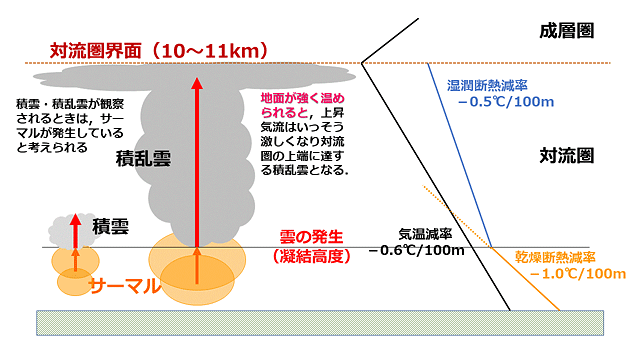
風がないとき,サーマルは断熱膨張しながら上昇していきます.このとき100m上昇するたびに約1℃温度が下がります (乾燥断熱減率).一方気温は一般に高いところほど低くなりますが,こちらは100m上昇するたびに約0.6℃温度が下がります (気温減率).サーマルが上昇し始めたときはまわりより温度が高いのですが,サーマルの方が気温の下がりかたが大きいので,(雲が発生しない限りは) やがてまわりの気温と同じになるときがきます.こうなるとサーマルはもはや上昇できなくなります.
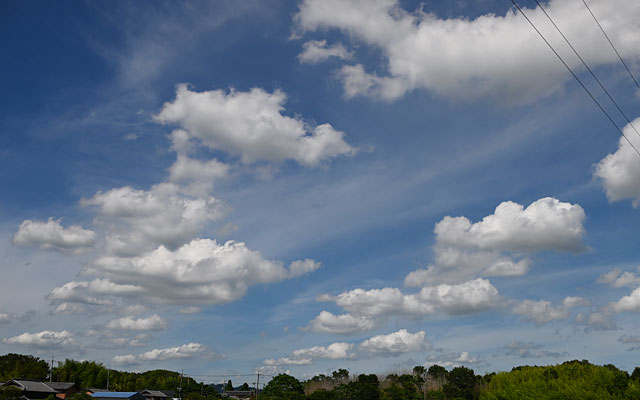
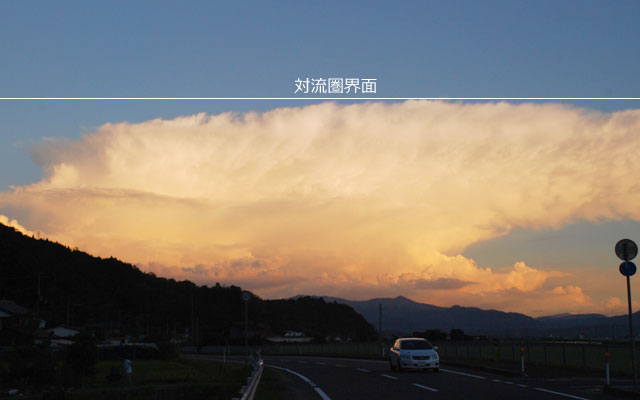
一方雲ができるときは少し状況が違ってきます.サーマルが上昇すると,ある高さ (凝結高度) で雲が発生する場合があります.雲が発生してもサーマルは上昇し続けますが,水蒸気が凝結して雲になるときに凝結熱 (潜熱) が放出されますので,その分気温の下がりかたが鈍くなります.雲ができながら上昇する場合,100m上昇するたびに約0.5℃気温が下がります (湿潤断熱減率).したがって気温減率より小さくなって,原理的にはサーマルはどんどん上昇し続けます.夏の暑い日など地面が強く熱せられ上昇気流の強いサーマルが発生した場合,対流圏界面まで上昇しながら雲を発達させます.これが積乱雲です.そこまで強いサーマルではない場合は積雲をつくります.積雲と積乱雲は対流雲といってサーマルによってつくられる典型的な雲です (図19).ちなみにグライダーを飛ばすときは,積雲が出ている日がいいそうです.
図19.雲ができる場合のサーマルによる上昇気流.気温減率,湿潤断熱減率,乾燥断熱減率などの数値は条件によって変化するので,あくまで原理的な理解の図だと思ってほしい.上空へ行くほど気温が下がるのは対流圏の性質であって,成層圏では上空へ行くほど逆に気温が上昇する.したがって,空気塊上昇は対流圏界面で止まり,積乱雲はそこで発生が止まる.
図20 (上),21 (下).積雲と積乱雲.上が積雲で雲底が一定の高さにあるのが分かるだろう.この高さが凝結高度.下の積乱雲は金敷雲とも言われ,上部が対流圏界面に一致し平らになる.
サーマルは,トンボだけでなく,チョウやバッタなど,渡りをする昆虫を上昇させるのにも役立っています.例えばオオカバマダラという有名な渡りをするチョウが2,300mまで持ち上げられた記録があります (
Strauss, 1985).トンボでも,アメリカギンヤンマが高度2,300mの高さのところを力強く飛んでいた記録 (
Glick, 1939) や,4,000mの標高にある氷河にトラップされていたアメリカギンヤンマの記録 (
Papp, 1974) なども,この上昇気流で説明が可能です.
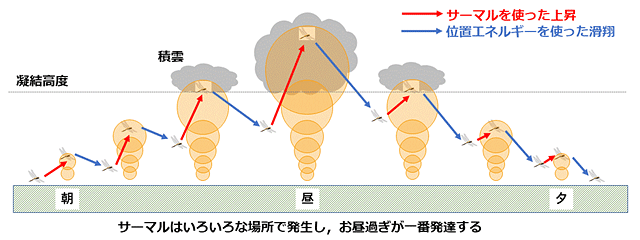
サーマルはトンボを上昇させるだけでなく,トンボはこれでかせいだ位置エネルギーを使って降下しながら滑空前進できます.そして次のサーマルをとらえることができたらまた上昇して同じことを繰り返せます.うまくサーマルをとらえられなければ,はばたき飛行をしてサーマルを探せばいいでしょう.こうやって継続的省エネ飛行が可能になります.また,サーマルは午前中は太陽高度の上昇とともに発達してそのてっぺんが高くなっていき,午後は逆に低くなっていきます.つまり次々とサーマルにうまく乗れば,高さも自動的に調整されることになります (図22).
図22.よく晴れた風のない日に,サーマルだけを使って省エネ飛行(滑翔を中心とした飛行)する場合の理論図.あくまで理屈だけで考えたもので,実際にこのようになっているかどうかは分からない.横軸は時刻とともに位置の変化も表している.サーマルの発達が時刻によって異なるので,サーマルを渡り歩いていけば,夕方には地上付近に到達する.図では雲の中を飛行しているように描いているが,雲の下を飛んでいるかもしれない.必要に応じてはばたき飛行も利用することになる.Corbet (1999) の記述を参照して描画.
実際さまざまの飛行で,サーマルをどれほど利用しているかはトンボに聞くしかありません.サーマルを利用しなくても,はばたき飛行で高度をかせぎ,その位置エネルギーで滑翔することも可能だからです.おそらくトンボは,サーマルを利用できるときは利用し,そうでないときははばたき飛行をして上昇し,滑翔しているのではないでしょうか.
さて,次にトンボの飛行にとってもう一つの重要な気流をつくりだす,大気の収束についてみていくことにしましょう.大気の収束帯,つまり前線は,異なる性質を持つ空気がぶつかったところにできます.また前線ができるところは,前線に向かって風 (収束風) が吹くので,移動昆虫に水平方向の駆動力を与えます.小規模飛行の場合や,大規模飛行でも,処女飛行や通勤飛行などでは,サーマルだけでも十分距離が稼げそうです.しかし,海を渡るような長距離飛行の場合は,水平方向の駆動力の助けを借りないと,速度が出ないと思われます.
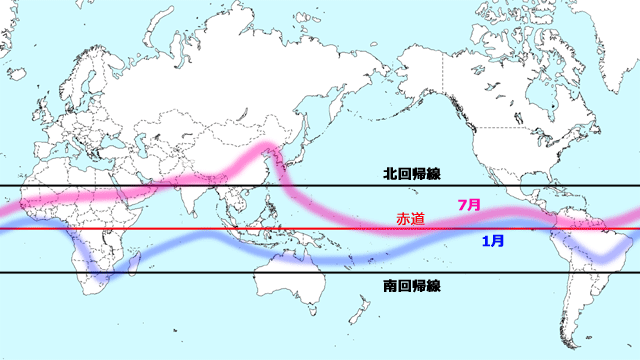
日本では,収束帯は,温暖前線,寒冷前線,停滞前線などの形でみられます.温帯地域の収束帯は不安定で生成消滅を繰り返します.しかし地球規模で安定した収束帯がみられる地域があります.それは熱帯です.熱帯収束帯 (ITCZ) と呼ばれるこの巨大な収束帯は,基本的に北東貿易風と南東貿易風がぶつかったところにできますが,その位置はモンスーンの影響も受けています.熱帯収束帯では激しい上昇気流が生じ,雲が発達してたくさんの雨が降ります.水を必要とするトンボやその他の昆虫にとっては非常に重要な意味を持つ場所です.また熱帯収束帯は太陽のみかけの動きにともなって,夏は北の方に,冬は南の方に移動します(図9).
図23.熱帯収束帯の大まかな位置とその移動.さまざまな資料をもとに作成.アフリカ東部から太平洋東岸にかけて,1月と7月の位置が大きく開いている.これはこの地域に吹くアジアモンスーンの影響を受けているためと考えられる.つまり北半球の夏にはアラビア海やインド洋から大陸に向かって,同じく冬には大陸から海に向かってモンスーンが吹くので,熱帯収束帯がそれぞれ北や南へ押されていると考えられる.7月には,この東端に位置する日本付近まで熱帯収束帯がやってきていることに,南方からの飛来種という観点で注目したい.
熱帯収束帯の移動とともに移動する昆虫にサバクトビバッタがいます.バッタは農作物に甚大な被害を及ぼしますので,その飛来が古来から記録され,最近もよく研究されています.アフリカ北部では,春から夏にかけて,熱帯収束帯の北上とともに,南からの収束風に乗ってサバクトビバッタの群れが北上し,秋になると今度は熱帯収束帯の南下にともなって,北からの収束風に乗ってサバクトビバッタも南下し,アフリカ東部に移動するそうです (Williams, 1958).
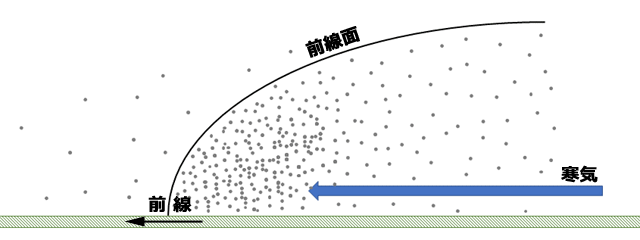
収束帯は,飛行している昆虫に,収束風によって水平の駆動力を与えるだけでなく,その昆虫を集合させる効果があるといわれています.イギリスの
Schaefer (1976) は,寒冷前線の通過にともなう飛翔昆虫の密度を,レーダーを使ってとらえています.それによると,寒冷前線の通過後,通過前より飛翔昆虫の密度が60倍にも増加したそうです.つまり寒冷前線に向かって吹く寒気が,飛翔昆虫を前線面の下側に集結させているのです (図24).
図24.寒冷前線によって飛翔昆虫が集合してくるようす.Schaefer (1976) を参考にして描画.
さて,主に上昇気流について述べてきましたが,水平方向に吹く風がトンボをはじめとした昆虫の移動にとって重要なことは言うまでもありません.気圧傾度によって吹く風,モンスーン (季節風),海風や陸風など,これらの風が追い風となって,昆虫に水平方向の駆動力を与えています.日本にやって来る台風は原則熱帯収束帯で発生します.したがって,熱帯収束帯に集まってきたトンボは,台風によって運ばれる可能性があります.
より高高度を吹く,地衡風,偏西風,ジェット気流などが昆虫を運ぶかどうかは,なかなかその証拠を直接つかむことができませんが,ネパールのクーンブ・ヒマール山群というエベレストの近くで,標高6,300mを飛ぶウスバキトンボが目撃されていて,さらに恒雪帯と呼ばれる氷河が発達しているような高度まで移住飛行の記録があるということです (Wojtusiak, 1974).
*4.ウスバキトンボが高高度を飛んで移動することに関しては,
別の章を参考にして欲しい.
*5.サーマルは周囲との温度差ができるようなところによく発生します.林縁や水辺などに開放的な地面があるような場合です.その大きさは,温められる地面の大きさに影響され,さまざまです.一方海のように一様に温められる場所では発生しにくくなります.ただし温度の違う潮の流れ (海流) などがある場合は別です.なおサーマルの上昇にともなって,その周囲には下降気流ができます.
トンボの生態学 8.成虫の飛行移動
ヨツボシトンボ原名亜種の集団移住
さて,理論的な話ばかりが続きました.最後に,実際のトンボの移動例についてお話ししてみたいと思います.日本に分布するトンボの中では,なんといってもウスバキトンボが絶対的移住者としては有名ですが,これについては
別の章で扱っています
*6.ここでは,ヨーロッパではよく知られているヨツボシトンボ原名亜種
Libellula quadrimaculata quadrimaculata の集団移住について紹介したいと思います.
Ⅰ.ヨツボシトンボ原名亜種の集団移住の経路
この地域のトンボの集団移住は19世紀から記録されていて,多くの人々も認識していたようです.ただし,目撃された移住性トンボは,ヨツボシトンボ原名亜種だけではなく,
Lebellula depressa やアカネ属のトンボなどの移住も含まれていたようですが,やはり大半はヨツボシトンボ原名亜種によるものです.ヨツボシトンボ原名亜種の集団移住については,Dumont & Hinnekint (1973)が1971年にベルギー,フランス,オランダで起きた事例について,かなり詳細にまとめています.この論文を中心に,集団移住のようすを紹介します.
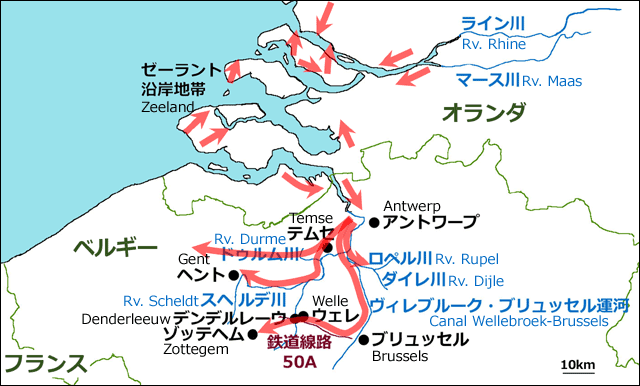
この出来事はたくさんの人に目撃され,マスコミにも大きく取り上げられました.その結果,各地から多くの情報が寄せられ,その全体像が明らかになっていきました.筆者らはそれらの情報の真偽性の確認のため,また欠落部分を埋めるために,さらに情報を積極的に収集し,可能な限りの移住の全体像を明らかにしていきました.それをまとめた移動経路が図26です.
*6.本章改定前ではここに「ウスバキトンボの話」がありましたが,「第5章 トンボの話題」に移動しました.
ここをクリックしてください.
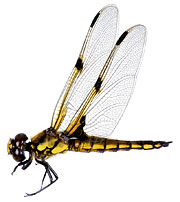
図25.ヨツボシトンボ日本亜種
Libellula quadrimaculata asahinai
図26.1971年に発生したヨツボシトンボ原名亜種の確認できた集団移動ルート.詳細は本文参照.Dumont & Hinnekint (1973) をもとに描画.
1971年6月2日頃,オランダのゼーラント (Zeeland) 沿岸地域に,ヨツボシトンボ原名亜種が極めて大量に出現しました.トンボたちはこの地域を1週間以上にわたって群飛していたようです.この地域に流れ込む川のうち,ライン川 (Rv. Rhine) とマース川 (Rv. Naas) の流域には湿地帯が点在し,好適なヨツボシトンボ原名亜種の生育環境を提供しており,過去にも同種の群れが観察されていました.
このゼーラントの集団の一部は,スヘルデ川 (Rv. Scheldet:エスコー川と同じ) をさかのぼり,アントワープ (Antwerp) 近郊を通過していきました.アントワープでは,なんと2日間,この通過する群れが観察されていたといいます.スヘルデ川のアントワープより上流地点で,群れの一部はロペル川 (Rv. Ripel) をさかのぼってダイレ川 (Rv. Dijle) にまで到達しました.
一方群れの多くはブリュッセル (Brusseles) の方へ向かい,ヴィレブルーク・ブリュッセル運河 (Canal Wellebroek-Brussels) をさかのぼっていきました.ブリュッセルの中心部に到達したのが6月4日あたりのようです.ブリュッセル市内では,群れはやや小さな集団へと分裂したようです.
その後,この分裂した集団の一つは,鉄道線路50A系統に沿って進みました.この線路沿いでは多くの目撃情報がありました.例えばブリュッセルを出てすぐのジェッテ (Jette) では,長さ約1.5km,幅約50m,高度1~4mで,トンボ同士の間隔が50cm程度といった群れの状況が記録されています.単純に計算すると,約400,000頭程度の群れという計算になります.これが6月4日の夕刻のことです.
この群れはやがてデンデレーウ (Denderleeuw) に到達しましたが,ここで雷雨をともなう悪天候に遭遇し,一部がウェレ (Welle) 村にある湿地帯 (ウェレメールセン,Wellemeersen) に吹き戻されたといいます.
残りの群れはさらに西進し,ゾッテヘム (Zottengem) に至りました.ゾッテヘムに到達した群れは相当に疲弊しており,鳥による激しい捕食を受けました.ゾッテヘムの少し手前での目撃情報では,群れのサイズは長さ約1.5km,幅約200m,高度8m以上と記録されています.これを目撃した農夫は,ツバメによる激しい捕食を見ており,翌日には牧草地に何百というトンボの翅が散らばっていたと話しています.
さて少し話を戻して,スヘルデ川のアントワープ上流では,テムセ (Temse) を通ってヘント (Gent) へとスヘルデ川をさかのぼる群れと,途中からドゥルム川 (Rv. Durme) へと分岐していく群れの存在が確認されています.これらの群れも,最終的には,駐車中の車に衝突したり,猫や鳥に捕食されて,全滅したとされています.
以上が1971年6月に見られた集団移住の移動経路です.遠い外国の地理なのでイメージが難しいですが,要約すると,おそらくライン川やマース川,その他で発生したヨツボシトンボ原名亜種の集団がゼーラントの海岸近くに集結し,その一部がスヘルデ川をさかのぼって移動し,いくつかの群れに分かれながら,最終的に全滅した,というお話になると思います.まだまだ他の地域へ分散移動していった群れがあったと考えられますが,追跡はできていないようです.
Ⅱ.この集団移住に関する考察
Dumont & Hinnekint (1973) は,中央ヨーロッパおよび北ヨーロッパにおける,19世紀初頭以降のヨツボシトンボ原名亜種の集団移住記録を見直し整理しました.すると,この集団移住は約10年の周期 (範囲は6~14年) で生じている現象であることがわかりました.その周期的な出来事はかなり安定しており,ヨツボシトンボ原名亜種の個体群密度の高い時期と一致しているということが,1971年の例以外にも存在することが確かめられました.
すなわち,個体群密度増加->集団的移住->大量死による個体数減少->個体群密度増加->集団的移住->・・・,という増減が約10年周期で生じているということになります.この個体群密度の周期的変動ということは生態学ではよく知られた現象で,高校の生物教科書にも載っている,
捕食者-被食者の関係です.高校生物基礎の教科書には,カンジキウサギとオオヤマネコの例が扱われていて,これはネット検索してもすぐに出てきます.この二者は北アメリカの森林地帯に棲息しており,約10年周期で個体数が増減することが知られています.
そのしくみは次のようなものです.被食者であるカンジキウサギが個体数を増加させたとします.するとその捕食者であるオオヤマネコは,餌が豊富になるため個体数を増加させます.しかしオオヤマネコの個体数が増えて捕食が激しくなると,被食されるカンジキウサギの個体数が減少していきます.その結果,オオヤマネコは餌の不足に陥り,個体数を減少させていきます.すると今度は捕食されるカンジキウサギの個体数が減少することとなり,カンジキウサギの個体数が増加に転じます.以下同様のことが繰り返され,個体数が約10年収期で変動することになります.
Dumont & Hinnekint (1973) はこの点を重視し,一つの仮説を提唱しました.もちろん被食者に相当するのはヨツボシトンボ原名亜種ですが,捕食者に該当する生物に,我々にはあまりなじみのない
「寄生虫」を選んだのです.これらの集団移住の最終的運命は,さまざまの鳥類による捕食でした.鳥類を終宿主とする寄生虫のうち,トンボが中間宿主となるのは,二生吸虫
Prosthogonimus 属が多いのです (Corbet,1999).
ヨーロッパでトンボ病として知られるプロストゴニムス症を引き起こす二生吸虫は,タニシなどの淡水産巻き貝を第一中間宿主とし,それを食べるトンボ幼虫および羽化した成虫が第二中間宿主,終宿主が鳥類となります.この病気が知られている地域の農家では,アヒルなどをトンボから隔離する (餌として食べないようにする) 飼育が施されているといいます.
この考え方は魅力的ですが,一つこの仮説には弱点があるように思えます.それは彼らも述べていますが,二生吸虫の寄生が集団的移住を引き起こすことに対する,生理学的しくみがはっきりしていない点です.寄生されたトンボの行動が変化することは十分予測されることだと述べていますが,まだ十分に明らかにされたわけではありません.
彼らがこの論文で特に強調したかったことは,移動を引き起こしやすい環境条件 (高密度状態,気象条件,およびそれに原因する一斉羽化) だけに集団移住の原因を求めるのではなく,寄生者とその中間宿主という生理学的・生態学的メカニズムにも目を向けるべきであるという指摘です.そういう点で,環境条件だけに注目してしまう傾向に,注意を喚起しています.
参考文献
青木典司,1997.標識調査によるベッコウトンボ成虫の動態について.昆虫と自然 32(7):11-18.
Azuma, A. & T. Watanabe, 1988. Flight performance of a dragonfly. J. exp. Biol., 137:221-252.
Corbet P.S., 1962. A Biology of Odonata. H. F. & G. Witherby ltd., GB.
Corbet P.S., 1999. Dragonflies Behavior and Ecology of Odonata. Cornell Universitiy Press. New York.
Corbet P.S. & Eda S., 1969. Odonata in southern Ontario, Canada in August 1968. Tombo 12:4-11.
Dumont H.J. & Hinnekint B.O.N., 1973.Mass migration in dragonflies, especially in Libellula quadrimaculata L.: a review, a new ecological approach and a new hypothesis. Odonatologica 2:1-20.
*Glick P. A., 1939. "The distribution of insects, spiders, and mites in the air." USDA Tech. Bull. 637:1-151. (in Corbet, 1999)
博物館友の会,1986.沖縄のトンボ.70pp. 沖縄県立博物館,那覇.
Hobson, K. A., H. Jinguji, Y Ichikawa, J. W. Kusack, and R. C. Anderson, 2021. Long-Distance Migration of the Globe Skimmer Dragonfly to Japan Revealed Using Stable Hydrogen (δ2H) Isotopes. Environmental Entomology 50(1):247-255.
井上 清,1988.淡路島のトンボ相調査会 第3回 秋.Gracile (39):25-32.
*Kallapur V. L., 1985. Some aspects of structual organaization and metabolic adaptations in the flight muscles of the dragonfly Pantala rlavescens. Peoc. 1st Indian Symp. Odonatol., Madurai:53-61. (in Corbet, 1999)
*Kallapur V. L. and George, C. J., 1973. Fatty acid oxidation by flight muscles of the dragonfly, Pantala flavescens. JIP 19:1035-1040. (in Corbet, 1999)
気象庁ホームページ,2022.4.22.現在.石垣島 平年値(年・月ごとの値).https://www.data.jma.go.jp/obd/stats/etrn/view/nml_sfc_ym.php?prec_no=91&block_no=47918.
May Michael, 1991. Dragonfly flght: Power requirements at high speed and acceleration. J. exp. Biol., 158:325-342.
三時 輝久・平田 真二,1997.ベッコウトンボの移動習性-山口県の生息地におけるマーキング調査の結果より-.昆虫と自然 32(7):27-32.
尾園 暁・川島逸郎・二橋 亮,2012.日本のトンボ.文一総合出版.東京.
Rüppell, G., 1989. Kinematic analysis of symmetrical flight manoeuvres of Odonata. J. exp. Biol., 144:13-42.
Papp, R. P., 1974. Recovery of Anax junius from a glacier in the Sierra Nevada (Odonata: Aeschnidae). Pan.-Pacif. Entomol. 50:67.
*Schaefer, G. W., 1976. Radar observations of insect flight. Symp. Roy. Entomol. Soc. Lond. 7:157-197. (in Corbet, 1999)
Snodgrass, R. E., 1935.Principles of insect morphology. Cornel University Press, London.
*Strauss S., 1985. Monarchs: monarchs of flight [interview with D. L. Gibo]. Globe and Mail, Toronto, 18 Nobember, A12. (in Corbet, 1999)
Tillyard, B. J., 1917. The biology of dragonflies (Odonata or Paraneuroptera). Cambridge University Press, London.
津田 滋,2000.世界のトンボ分布目録.自刊.
Williams, C. B., 1958. Insect migration. (長澤純夫 訳.1986.昆虫の渡り.築地書館.)
Wojtusiak, J., 1974. A dragonfly migration in the hugh Hindu Kush (Afghanistan), with a note on high altitude records of Aeshna juncea mongolica Bartenev, and Pantala flavescens (Fabricius) (Anisoptera: Aeshnidae, Libellulidae). Odonatologica 3(2): 137-142.
Weather Spark, 2022.4.25.現在.https://ja.weatherspark.com/y/141107/石垣市、日本における年間の平均的な気候#Sections-Clouds.
山口 晴幸,2008.沖縄水史観(X).隆起環礁の島「南大東島」の誕生と日本最大規模を誇るカルスト湖沼群.水利科学 (302):86-100.